Orijinal Araştırma Makalesi
Front. Bioeng. Biotechnol., 13 Kasım 2026
Sanayi Biyolojisi Bölümü
Cilt 14 – 2026 | https://doi.org/10.3389/fbioe.2026.1998859

- HL
Hoe-Suk Lee 1†
- SN
Seongsu Na 2,3†
- HJ
Hanna Jang 2
- JO
Jisung Oh 2
- GJ
Gwi-Taek Jeong 4
- YP
Young-Tae Park 3
- YJ
Young Joo Yeon 2
-
1. Kore Cumhuriyeti, Seul, Kookmin Üniversitesi, Bütünleştirici Biyoloji Bölümü
-
2. Kore Cumhuriyeti, Gangneung, Kangwon Ulusal Üniversitesi, Biyokimyasal Mühendislik Bölümü
-
3. Kore Cumhuriyeti, Gangneung, Bilim ve Teknoloji Enstitüsü (KIST), Doğal Ürün Etkinliği Optimizasyonu Merkezi
-
4. Kore Cumhuriyeti, Busan, Pukyong Ulusal Üniversitesi, Biyoloji Bölümü
Makale Ölçümleri
Özet
γ-Valerolactone (GVL), geniş endüstriyel uygulama alanına sahip biyokütle kaynaklı bir platform kimyasal olup, enantiyomerik saflık derecesi yüksek formları ince kimyasal sentezinde değerli kiral yapı taşlarıdır. Burada, levülinik asidi (LA) enantiyomerik saflık derecesi yüksek (R)- veya (S)-GVL’ye stereodivergent şekilde dönüştüren tamamen biyokatalitik bir Escherichia coli bütün-hücre kaskadı geliştirdik. Modüler sistem, mühendislik yoluyla geliştirilmiş dehidrogenazlar aracılığıyla stereokomplementer LA indirgenmesi, format dehidrogenazı (FDH) bağımlı nikotinamid kofaktör rejenerasyonu ve perizplazmaya hedeflendirilmiş mühendislik yoluyla geliştirilmiş paraoksonez-1 (ePON1) aracılığıyla 4-hidroksivaleratın (4HV) laktonezasyonu içeriyor. Perizplazmaya hedeflendirme, hedeflendirilmemiş yapı ile karşılaştırıldığında 4HV’den bütün-hücre GVL oluşumunu görünürde 8,2 kat artırdı. Entegre tek-kazık bütün-hücre kaskadları, her iki ürün için de >99,9% enantiyomerik fazlalık ile sırasıyla 64,5% ve 52,0% verimlerde (R)-GVL ve (S)-GVL üretmiştir; bu değerler, PON1 tabanlı biyolojik bir GVL üretim sistemi için önceki literatürde bildirilen maksimum 4HV-to-GVL laktonezasyon kesrini aşmaktadır. Kaskad, ayrıca gıda atıklarından elde edilen biyokütle tarafından üretilen LA içeren akışkanlara uygulanmıştır. Bu akışkanlar, doğal olarak LA’ya göre yaklaşık 1,0–1,5 mol denklemi kadar yan ürün olarak format içermekte ve FDH bağımlı kofaktör rejenerasyonu için gerekli stökiometrik indirgenme-eşdeğeri gereksinimini yakından karşılamaktadır; böylece exogen format takviyesi olmadan biyodönüşüm mümkün olmuştur. Bu biyokütle kaynaklı akışkanların kullanımıyla, GVL verimleri sırasıyla (R)- ve (S)-yollar üzerinden 38,3% ve 70,0%’ye kadar ulaşmıştır. Önemlisi, LA saflaştırması sırasında aşağı akışta ayırma yüküne katkıda bulunması gereken format, içsel bir indirgenme-gücü kaynağı olarak doğrudan kullanılmış; bu da hem ayırma gereksinimlerini hem de dışsal format takviyesi ihtiyacını potansiyel olarak azaltabilir. Bu sonuçlar, yenilenebilir LA yükseltilmesini biyokütle kaynaklı bir yan ürünün doğrudan değerlendirme ile birleştiren, son derece enantiyoselektif ve stereodivergent GVL üretimi için modüler bir bütün-hücre stratejisi ortaya koymaktadır.
1 Giriş
Yenilenebilir karbonun yakıtlara, kimyasallara ve malzemelere dönüştürülmesini sağlayan süreçlerin geliştirilmesi, dairesel biyoekonominin merkezinde yer alır. Levülik asit (LA), karbohidratça zengin artıklardan üretilebilmesi ve sonrasında katma değerli ürünlere yükseltilebilmesi nedeniyle biyokütleden elde edilen temsilci bir platform molekülüdür. LA kaynaklı kimyasallar arasında γ-valerolakton (GVL), yeşil çözücü, yakıt katkı bileşeni, polimerle ilgili ara ürün ve kimyasal yapı taşı olarak dikkat çekicidir (Alonso et al., 2013; Hijazi et al., 2022; Xu et al., 2020).
Enantiopür GVL, ayrıca ince kimyasal sentezinde ilgili bir kiral lakton iskeleti sağlar. LA’ın doğrudan asimetrik hidrojenezinde kiral geçiş metali katalizörleri kullanılmış olsa da, bildirilen süreçler stereoselektivite ile reaksiyon şiddeti arasında ödünleşimler içerir. Örneğin, Ru/SEGPHOS katalizeli hidrojenez, 82’ye kadar % ee ile (S)-GVL vermiş ve yükseltilmiş sıcaklık ile H₂ basıncı gerektirmiştir; daha yeni bir Ni/fosfin sistemi ise enantiopürlüğü yaklaşık %95–96 ee’ye çıkarmış, ancak yine bir kiral metal katalizörüne, basınçlı H₂’ye ve organik reaksiyon ortamına dayanmıştır (Tukacs et al., 2015; Deng et al., 2022). Kimyoenzimatik bir alternatif, LA’ın stereoselektif enzimatik indirgenmesiyle %99’u aşan ee ile elde edilmiş, ancak ayrı bir asit destekli laktonizasyon adımı gerektirmiş ve (R)-enantiomer için gösterilmiştir (Lee and Yeon, 2020). İlgili çalışmalar, yüksek stereokimyasal kontrolün organokatalitik veya enzimatik dönüşümler yoluyla diğer kiral lakton sistemlerinde de sağlanabildiğini ortaya koymuştur; ancak bu yaklaşımlar, LA’dan doğrudan GVL’e dönüştürme yerine yapısal olarak farklı ya da ön fonksiyonlandırılmış substratlar kullanır (Wu et al., 2011; Classen et al., 2014; Robescu et al., 2022). Buna karşılık, bu çalışma, stereokomplementer LA indirgenmesini, kofaktör rejenerasyonunu ve enzimatik laktonizasyonu modüler bir hücre içi kaskade entegre ederek, basınçlı H₂, kiral metal katalizörleri veya ayrı bir asit destekli halka kapanma adımı olmadan, hafif sulu koşullarda hem (R)- hem de (S)-GVL’e tek kapta ve %99.9’u aşan ee ile erişimi mümkün kılmaktadır.
Tonoli ve arkadaşları (2023), α-angelika laktonundan her iki GVL enantiomerine stereodivergent tek kapalı enzim kaskadını gösterirken, Cha ve arkadaşları (2025) yüksek enantiomeric zenginliğe sahip (R)-GVL’e giden biyokütle bağlantılı kemoenzimatik bir yol bildirmiştir. Diğer kiral laktonlara yönelik çoklu-enzim yolları gelişmeye devam etmiştir; bunlar arasında 2-deoksi-D-riboz-5-fosfat aldolaz (DERA)/alkol dehidrogenaz (ADH) temelli δ-lakton kaskadı (Abdelraheem ve arkadaşları, 2024) ve alkol dehidrogenaz sürücülü γ-lakton kaskadı (Liu ve arkadaşları, 2025) yer almaktadır. Bu yaklaşımlardan farklı olarak, mevcut çalışma LA’yı doğrudan yaygın bir bütün hücreli mimari içinde kullanır, yer değiştirilebilir enantiokomplementer indirgeme/kofaktör rejenerasyon dallarını perizmatik ePON1 aracılı laktonizasyon ile birleştirir ve biyokültrden elde edilen LA akışlarında eş üretilen formatı kullanır. İlerleme dolayısıyla, benzersiz bir lakton oluşum reaksiyonunun keşfinden çok, yol entegrasyonu, substrattan ürüne stereokimyasal yönlendirme ve besin akışı uyumluluğu düzeyindedir.
Mühendislik yoluyla elde edilen dehidrogenazlar LA’yı stereocomplementer 4-hidroksivalerat (4HV) ürünlerine indirgeyebilir (Yeon ve arkadaşları, 2013; ), ve (R)-rotası için kullanılan e3HBDH varyantı önceki bir kemoenzimatik GVL sentezinde de kullanılmıştır (Lee ve Yeon, 2020). Hidroksi asitlerin laktonizasyonu paraoksonez-1 (PON1) ile de bilinmektedir: saflaştırılmış PON1, pH’a bağlı dengye doğru hidroksi-akit/lakton dönüşümünü katalize eder ve en yüksek laktonizasyon aktivitesi yaklaşık pH 5,5–6 düzeyindedir (Teiber ve arkadaşları, 2003). Martin ve arkadaşları (2010), 4HV’nin 4-valerolaktona pH’a bağlı dönüşümü için sitozol dışı ifade edilen bir mutant PON1’ı daha da göstermiştir; ancak bu çalışmada ürün stereokimyası değerlendirilmemiştir. Böylece, mevcut çalışmanın amacı, her iki GVL antipoduna erişim için yer değiştirilebilir bütün-hücreli modüller içinde stereocomplementer LA indirgeme, format sürücülü kofaktör rejenerasyon ve sitozol dışı laktonizasyonu birleştirmektir.
Tüm hücreli biokataliz, enzim ifadesi, kofaktör rejenerasyonu ve katalizör stabilizasyonunu tek bir operasyonel birimde birleştirdiği için biyokaynakların yükseltilmesinde çekici bir yaklaşım sunar (de Carvalho, 2017; Wachtmeister ve Rother, 2016). Bu özellik, özellikle asit katalizli karbonhidrat dönüşümü sırasında formatin de eş üründen oluşabildiği biyokaynak kaynaklı LA akışlarında büyük önem taşır. Formatin yalnızca uzaklaştırılması gereken bir yan ürün olarak ele alınmak yerine, indirgen eşdeğerleri format dehidrogenaz (FDH) bağımlı nikotinamid kofaktör rejenerasyonunda kullanılabilir ve biyokaynak kaynaklı hammadde ile aşağı damarlı biokatalizi birbirine bağlar. Başlıca lignoselüloz ve protein bakımından zengin bir bira yan ürünü olan bira posası (BSG) ile kitin bakımından zengin deniz ürünleri atıklarından elde edilen kitosan, bileşim bakımından birbirinden farklı, gıda atığı kaynaklı biyokaynak hammadde olarak burada seçilmiştir (Ikram et al., 2017; Lynch et al., 2021; Chen et al., 2016; Yadav et al., 2019; Zeko-Pivač et al., 2022).
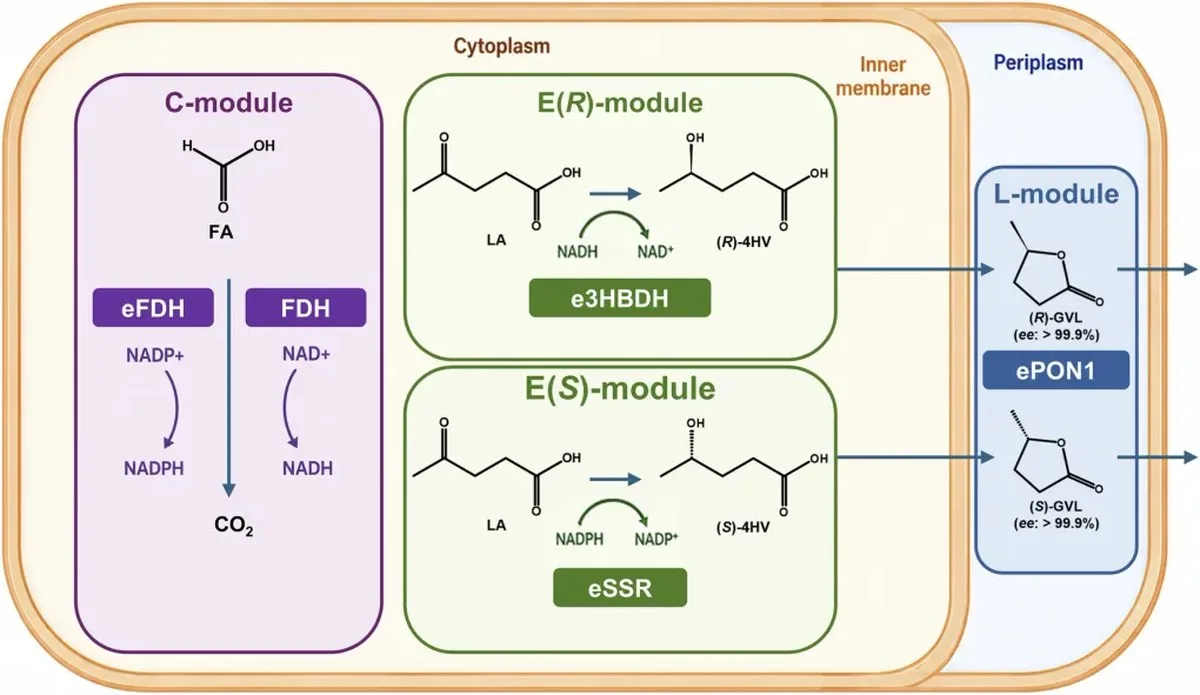
Bu çalışmada, stereodivergent GVL üretimi için stereodestekleyici LA indirgenmesi, formattan beslenen kofaktör rejenerasyonu ve perizplazmik enzimik laktonizasyonu birleştiren modüler bir Escherichia coli tüm hücre platformu geliştirdik (Şekil 1). Yalnızca stereoselektif indirgenaz modülü değiştirilerek, aynı overall kasket aynı kofaktör rejenerasyonu ve laktonizasyon işlevlerini koruyarak istenen (R)- veya (S)-GVL yönüne yönlendirilebilir. Mühendislik yoluyla PON1’in perizplazmik hedeflendirmesi, tüm hücrede GVL oluşumunu artırmak için kullanıldı ve bütünleşik sistem, tek kapta her iki GVL antipodunun da yüksek enantioselektif üretimini sağladı. Kasket, BSG ve kitozandan elde edilen LA/format içeren akışkanlara uygulanarak, eş üretilen formanın biyodönüşüm için doğrudan indirgeme gücü kaynağı olarak kullanılması sağlandı. Biyokütleden LA aşaması metansülfonik asitle (MSA) katalizlenmiş hidrotermal muamele ile ayrı olarak gerçekleştirilirken, LA’dan GVL’e yükseltme aşaması tamamen biokatalitikti. Genel olarak bu strateji, modüler stereo kontrolü, içsel kofaktör rejenerasyonu ve gıda atıklarından elde edilen LA/format akışkanlarıyla uyumluluğu tek bir tüm hücre çerçevesinde birleştiriyor.
ŞEKİL 1
2 Malzemeler ve yöntemler
2.1 Kimyasallar, standartlar, biyokütle hammadde kaynakları, suşlar ve plazmidler
Sodyum levülinat, sodyum format ve enantiopür (R)- ve (S)-GVL standartları Sigma-Aldrich’ten (St. Louis, MO, USA) temin edildi. 4HV standardı Santa Cruz Biotechnology’den (Dallas, TX, USA) satın alındı. Luria-Bertani (LB) besiyeri BD Biosciences’ten (San Jose, CA, USA) temin edildi. Ampicilin ve streptomycin Cayman Chemical’den (Ann Arbor, MI, USA) satın alındı. Gorilla Brewing Co.’dan (Busan, Güney Korea) temin edilen BSG kurutuldu, öğütüldü ve ełlendi; 355–500 μm boyut aralığındaki parçacıklar kullanıldı. Kitosan tozu Showa Chemical Co., Ltd.’den (Tokyo, Japan) satın alındı. Metansülfonik acid Samchun Pure Chemical Co., Ltd.’den (Pyeongtaek, Güney Korea) satın alındı. E. coli DH5α ve BL21 (DE3) Invitrogen’den satın alındı ve sırasıyla klonlama ve enzim ifadesi/tüm hücre katalizi için kullanıldı. Bu çalışmada kullanılan genler, plazmidler ve sinyal peptitleri Ek Tablo S1’de, klonlama primerleri ise Ek Tablo S2’de listelenmiştir. Diğer tüm kimyasallar Sigma-Aldrich’ten satın alındı ve olduğu gibi kullanıldı.
2.2 Plazmid yapımı ve modüler kaskad tasarımı
Kaskad üç işlevsel modüle ayrıldı. E(R)-modül, LA’nın (R)-4HV’ye NADH-bağlı dönüşümü için mühendislik yapılmış 3-hidroksibütrat dehidrogenazı (e3HBDH H144L/W187F) içeriyordu (Yeon et al., 2013). E(S)-modül, LA’nın (S)-4HV’ye NADPH-bağlı dönüşümü için mühendislik yapılmış sukkinat semialdehit redüktazı (eSSR M24W) içeriyordu (Yeon et al., 2015). C-modül, NADH rejenerasyonu için format dehidrogenazı (FDH) veya NADPH rejenerasyonu için mühendislik yapılmış FDH (eFDH D222Q/H224N) içeriyordu (Ihara et al., 2013). L-modül, 4HV’nin GVL’ye laktonezasyonu için perizasmal sinyal peptitleriyle birleştirilmiş mühendislik yapılmış paraoksonez-1 varyantı G3C9’u (ePON1) içeriyordu (Aharoni et al., 2004).
pETDuet-e3HBDH-FDH plazidi (E(R)-modülü + C-modülü), e3HBDH’nin pETDuet-1’in NcoI/EcoRI bölgelerine ve FDH’nin NdeI/XhoI bölgelerine klonlanmasıyla oluşturuldu. pETDuet-eSSR-eFDH plazidi (E(S)-modülü + C-modülü), eSSR’in pETDuet-1’in NcoI/EcoRI bölgelerine ve eFDH’nin NdeI/XhoI bölgelerine klonlanmasıyla oluşturuldu. pCDFDuet-ePON1 plazidi (L-modülü), ePON1’in pCDFDuet-1’in NdeI/XhoI bölgelerine klonlanmasıyla oluşturuldu. Sinyal peptid varyantları, ePON1’e G3C9, PhoA, OmpA, MalE veya DsbA’nın füzyonuyla perizmatik hedeflemeye yönelik üretildi.
2.3 Hücre kültürü, enzim ifadesi ve protein saflaştırması
pETDuet-1 ve pCDFDuet-1 temeli plazidler sırasıyla ampisilin (100 μg mL⁻¹) ve streptomisin (50 μg mL⁻¹) varlığında korundu. Her plazid E. coli BL21 (DE3) içine dönüştürüldü. Dönüşlü hücreler, uygun antibiyotik(ler) içeren LB agar üzerinde seçildi ve 18 saat boyunca 37 °C’de inkübe edildi.
Tohum kültürü için tek bir koloni, uygun antibiyotik(ler) ile zenginleştirilmiş 10 mL LB ortamına aşıldı ve 37 °C’de 200 rpm’de çalkalama yaparak gece boyu kültürlendi. Tohum kültürü, uygun antibiyotik(ler) içeren 1 L LB ortamına (1:100, v/v) aşıldı ve optik yoğunluğun 600 nm’de (OD600) 0,6–0,7’ye ulaşmasına kadar 37 °C’de 150 rpm’de çalkalama yaparak kültürlendi. Protein ifadesi, son konsantrasyon 0,8 mM olacak şekilde izopropil β-D-1-tiyogalaktopiranozid (IPTG) ile indüklendi ve ardından 20 saat boyunca 18 °C’de 120 rpm’de çalkalama yaparak inkübe edildi. ePON1 ifade eden kültürlerde, indükleme anında CaCl₂ son konsantrasyon 0,1 mM olacak şekilde eklendi. Hücreler, 4 °C’de 20 dakika boyunca 2.000 × g’da santrifüglemeyle toplandı. Enzim saflaştırması için hücre pelletleri lizisten önce −80 °C’de saklandı; tüm hücre biokatalizi için pelletler 4 °C’de saklandı ve 24 saat içinde kullanıldı.
Arındırma için, dondurulan hücre pelletleri üreticinin talimatlarına uygun olarak BugBuster reajanı (Merck Millipore, Billerica, MA, USA) kullanılarak yeniden süspanze edildi ve lize edildi. Hücre kalıntıları 4 °C’da 20 dakika boyunca 11.300 × g merkezkaç ile uzaklaştırıldı ve elde edilen süpernant, hafif karıştırma ile 1 saat boyunca 4 °C’da nikel–nitrilotriasetik asit (Ni–NTA) reçinesi (Qiagen, Hilden, Almanya) ile inkübe edildi. His6-etiketli proteinler Ni–NTA afinitesi kromatografisi ile arındırıldı. Reçine yıkama buffer’ı (20 mM Tris-HCl, 150 mM NaCl, 20 mM imidazol, pH 8.0) ile yıkandı ve proteinler elüsyon buffer’ı (20 mM Tris-HCl, 150 mM NaCl, 250 mM imidazol, pH 8.0) ile elüe edildi. Arındırılmış enzimler Bradford testi ile kantitatif olarak belirlendi ve 12% sodyum dodecil sülfat–poliakrilamid jel elektroforezi ile doğrulandı (gösterilmeyen veriler).
2.4 Yapısal modelleme ve eşleştirme
Aktif bölge geometrisi ve olası hidrid/proton aktarım yönelimlerini incelemek için yapısal analizler gerçekleştirildi. Protein yapıları RCSB Protein Data Bank’dan elde edildi: 3HBDH (PDB ID: 3VDR) ve SSR (PDB ID: 2C91) (Hoque ve ark., 2009; Zhu ve ark., 2006). PON1 G3C9 yapısı AlphaFold 3 Sunucusu (Abramson ve ark., 2024) kullanılarak oluşturuldu. 3HBDH ve SSR için mutant modelleri Maestro (Schrödinger, New York, NY, USA) içinde Protein Preparation Wizard ve Prime kullanılarak oluşturuldu; pH 6.5’te protonasyon durumları atandı, ardından yapılar OPLS4 kuvvet alanı kullanılarak enerji minimize edildi.
Ligand yapıları, LA, (R)-4HV ve (S)-4HV dahil olmak üzere LigPrep kullanılarak hazırlandı ve Glide SP ile aktif bölge rezidüleri veya ko-kristalize ligand konumları merkezlenen reseptör ızgaraları kullanarak eşleştirildi. Eşleştirme konumları skor fonksiyonu ile derecelendirildi ve en üst sıradaki konumlar, substrat karbonili, nikotinamid kofaktörü ve katalitik rezidüler arasındaki verimli mesafeler açısından incelendi. Yapısal görselleştirme ve figil hazırlama PyMOL (Schrödinger, New York, NY, USA) kullanılarak gerçekleştirildi.
2.5 Paraoksonaz-1 laktonizasyon testleri ve perizazma hedeflendirmesi
ePON1 içeren assay’lerde GVL oluşumunun pH’a bağlılığı, pH 4.0–6.5 aralığını kapsayan 100 mM tampon sistemleriyle değerlendirildi. pH 4.0–5.5 için asetat tamponu, pH 5.5–6.0 için 2-(N-morpholino)etansülfonik asit (MES) tamponu ve pH 6.0–6.5 için Bis-Tris tamponu kullanıldı. Reaksiyonlar hem saflaştırılmış ePON1 hem de L-modülünü ifade eden bütünhücreli Escherichia coli kullanılarak gerçekleştirildi. Saflaştırılmış-enzim assay’lerinde, 4HV (20 mM) ePON1 (2 μM) ile 37 °C’de ve 50 rpm’de 3 saat inkübe edildi. Reaksiyonlar 99 °C’de 5 dakika ısı ile inaktivasyonla durduruldu. Bütünhücreli reaksiyonlarda, aynı substrat konsantrasyonu, sıcaklık, karıştırma hızı ve reaksiyon süresi altında 150 g L−1 ıslak hücre ağırlığı kullanıldı. GVL konsantrasyonu aşağıda açıklandığı gibi ölçüldü ve her assay formatında elde edilen maksimum değere göre normalize edildi; bu değer %100 olarak tanımlandı.
Perizmatik hedefleme analizi için G3C9, PhoA, OmpA, MalE ve DsbA sinyal peptitleri ePON1’e füze edildi. Bütünhücreli laktonizasyon aktivitesi, 4HV’den GVL oluşumu ölçülerek sinyal peptiti olmayan kontrola göre katmanlı artış olarak raporlandı.
2.6 Ticari levülinik asidin γ-valerolaktona biokatalitik dönüşümü
LA’dan GVL’e biokatalitik dönüşüm iki operasyonel aşamadan geçti: (i) LA’nın 4HV’ye stereoselektif indirgenmesi ve (ii) ePON1 varlığında 4HV laktonizasyonu. Kaskad saflaştırılmış enzimler, bütünhücreli katalizörler veya hibrit konfigürasyon kullanılarak değerlendirildi.
in vitro (R)-selektif reaksiyon için LA (20 mM), sodyum format (60 mM), CaCl2 (5 mM) ve NADH (2 mM), saflaştırılmış e3HBDH (7 μM), FDH (4 μM) ve ePON1 (5 μM) ile birlikte 100 mM MES tamponunda (pH 6.0) birleştirildi. Reaksiyon karışımı 37 °C’de ve 50 rpm’de karıştırarak inkübe edildi. in vitro (S)-selektif reaksiyon için LA, sodyum format, CaCl2 ve tamponun aynı konsantrasyonları kullanıldı; ancak NADH NADPH (2 mM) ile, enzimler ise eSSR (5 μM), eFDH (13 μM) ve ePON1 (5 μM) ile değiştirildi.
Toplu hücreli biyokatalitik reaksiyonlar için, ya e3HBDH/FDH/ePON1 ya da eSSR/eFDH/ePON1 ifade eden E. coli toplu hücreler (150 g L−1 kuru ağırlık), LA (20 mM), sodyum format (60 mM) ve CaCl₂ (5 mM) içeren 100 mM MES tamponunda (pH 5.5), 37 °C ve 50 rpm koşullarında kullanıldı. Hibrit formatta ise, ya e3HBDH/FDH ya da eSSR/eFDH ifade eden E. coli toplu hücreler (150 g L−1 kuru ağırlık), egzojen olarak eklenmiş saflaştırılmış ePON1 (5 μM) ile aynı reaksiyon koşullarında eşzamanlı olarak uygulandı.
2.7 Biyokütle kaynaklı levülik asit akışlarının hazırlanması ve karakterizasyonu
BSG, alkali ön işlem metodu ile ön işlendi. Kurutulmuş ve öğütülmüş BSG, 1:15 katı-sıoran oranında %1’lik NaOH çözeltisi (w/v) ile karıştırıldı ve 55 °C’de 5 h muamele edildi. Ön işlemden sonra katı fraksiyon ayrıldı ve kalan NaOH’ı uzaklaştırmak için distile suyla iyice yıkandı. Yıkandıktan sonraki ön işlenmiş BSG, 45 °C’de 2 gün kurutuldu ve sonraki deneylerde kullanıldı.
BSG ve kitosanın levülik asite katalitik dönüşümü, bir toplu reaktör sisteminde gerçekleştirildi (Ek Bilgi Şeması 1). Belirli bir miktar BSG veya kitosan, 50 mL paslanmaz çelik reaktöre 30 mL MSA çözeltisi içine eklendi. Reaksiyondan önce karışım, manyetik karıştırma ile 20 min boyunca iyice karıştırıldı. Reaktör bir yağ banyosuna yerleştirildi ve reaksiyon, ayarlanan sıcaklığa ulaşıldığında başlatıldı. Öncü ısıtma süresi yaklaşık 5 min’di. Reaksiyon sırasında karışım, yağ banyosunun manyetik karıştırıcısı kullanılarak 500 rpm’de sürekli karıştırıldı. Reaksiyon tamamlandıktan sonra reaktör, musluk suyuna daldırılarak hızlıca oda sıcaklığına soğutuldu. Elde edilen ürün çözeltisi, 17.000 rpm’de 10 min santrifüj ile geri alındı ve ardından yüksek performanslı sıvı kromatografisi (HPLC) analizinden önce 0.2 μm şiringe filtresinden filtrelendi.
İşlenmemiş ve NaOH ile ön işlem görmüş BSG için reaksiyon, 12,5% (w/w) BSG ve 0,75 M MSA kullanılarak 170 °C’de 40 dakika boyunca gerçekleştirildi. Kitosan dönüşümü için reaksiyon, 10,0% (w/w) kitosan ve 1,0 M MSA kullanılarak 200 °C’de 15 dakika boyunca yürütüldü. Tüm hücreli biyodönüşümden önce, her biyokütle kaynaklı akış, başlangıçta 20 mM LA konsantrasyonuna ulaşacak şekilde 100 mM MES tamponu (pH 5,5) ile seyreltildi. Ek formiat sodyumu veya CaCl2 eklenmedi; dolayısıyla kofaktör rejenerasyonu, MSA katalizli dönüşüm sırasında eş üretilen FA’dan sağlandı. 20 mM LA’ya seyreltildikten sonra, başlangıç FA konsantrasyonları sırasıyla ham-BSG-, NaOH ile ön işlem görmüş-BSG- ve kitosan kaynaklı akışlarda yaklaşık 29,3, 28,0 ve 20,5 mM idi.
2.8 Analitik yöntemler
LA, 4HV ve GVL; kırılma indisi dedektörü ile donatılmış bir ChroGen HPLC sistemiyle (Young In Chromass, Anyang, Güney Korea) kantitatif olarak belirlendi. Ayrıştırma, 65 °C’de muhafaza edilen bir Agilent Zorbax SB-Aq kolonu (4,6 × 150 mm, 3,5 μm) üzerinde gerçekleştirildi. Mobil faz, 1,0 mL min-1 akış hızında 25 mM amonyum formattan (formik asitle pH 2,0’a ayarlandı) oluşuyordu. Numuneler 99 °C’de 2 dakika ısı ile durdurularak hazırlandı, ardından 16.000 × g’de 5 dakika santrifüj edildi ve süpernatant 0,22 μm polivinilidene florür iğne filtresinden süzüldü. Enjeksiyon hacmi 10 μL idi. Bu koşullarda retansyon zamanları LA için 4,0 dakika, 4HV için 3,7 dakika ve GVL için 6,5 dakika olarak bulundu. Kantifikasyon, özgün standartlardan (0,3125–40 mM) hazırlanmış dış kalibrasyon eğrileri kullanılarak gerçekleştirildi.
Reaksiyon ürünlerindeki FA, LA, 5-hidroksimetilfurfural (5-HMF), asetik asit, furfural ve monomerik şeker konsantrasyonları; Bio-Rad Aminex HPX-87H kolonu ve kırılma indisi dedektörü ile donatılmış bir Agilent 1200 HPLC sistemi (Agilent Technologies, San Jose, CA, USA) kullanılarak belirlendi. HPLC analizi, 65 °C kolon fırını sıcaklığında mobil faz olarak 5 mM H2SO4 kullanılarak 0,6 mL min-1 akış hızında gerçekleştirildi.
GVL enantiomerleri, alev iyonlaşma dedektörü (Young In Chromass, Anyang, Güney Korea) ile donatılmış bir ChroZen GC sistemi kullanılarak gaz kromatografisi (GC) ile analiz edildi. Ayrıştırma, taşıyıcı gaz olarak He (%99,999) kullanılarak 1,0 mL min⁻¹ akış hızında, Rt-βDEXse kapiler kolonu üzerinde (Restek; 30 m × 0,25 mm, 0,25 μm) gerçekleştirildi. Enjektör, 1 μL enjeksiyon hacmiyle bölünmüş modda (bölünme oranı 1:50) çalıştırıldı ve enjektör ile dedektör sıcaklıkları sırasıyla 200 °C ve 230 °C’de korundu. Fırın sıcaklık programı başlangıçta 40 °C’de 5 min tutuldu, ardından 20 °C min⁻¹ hızla 200 °C’ye çıkarıldı. Enantiomerik fazlalık, ee (%) = |R – S|/(R + S) × 100 olarak hesaplandı; burada R ve S, GVL enantiomerlerinin tepe alanlarıdır. Aksi belirtilmedikçe, deneyler üç bağımsız tekrar kullanılarak gerçekleştirildi ve veriler ortalama ± standart sapma olarak sunuldu.
Ayrı bir saflaştırılmış enzim tarama deneyinde, biyokütle kaynaklı bileşenlerin olası inhibisyonu için e3HBDH veya eSSR (2,7–3,0 μM), LA (20 mM), indirgenmiş bir nikotinamid kofaktörü (0,2 mM) ve bireysel bileşenler (5-HMF, 0,40 mM; asetik asit, 8,75 mM; furfural, 0,13 mM; veya arabinoz, 0,37 mM) ile 100 mM MES tamponunda (pH 6,0) 37 °C’de, kaba başına 200 μL son hacimde inkübasyon edildi. Kofaktör tüketimi, her koşul için üç teknik tekrar kabında 340 nm’de izlendi ve başlangıç görünürcü aktiviteleri, LA içeren ve inhibitörden arındırılmış kontrol (%100) referans alınarak normalize edildi.
Gaz kromatografisi–kütle spektrometrisi (GC–MS, Young In Chromass, Anyang, Güney Korea) analizinde, kütle spektrumları 30–200 m/z aralığında elektron iyonlaşma modunda kaydedildi. İyon kaynağı ve arayüz sıcaklıkları sırasıyla 350 °C ve 250 °C’de ayarlandı. Tepler, Ulusal Standartlar ve Teknoloji Enstitüsü (NIST) referans spektrumuyla hizalandı ve anotlandı; benzerlik indeksi %98 olarak belirlendi.
3 Bulgular
3.1 Levülinik asidin 4-hidroksivalerata stereodivergent indirgenmesi
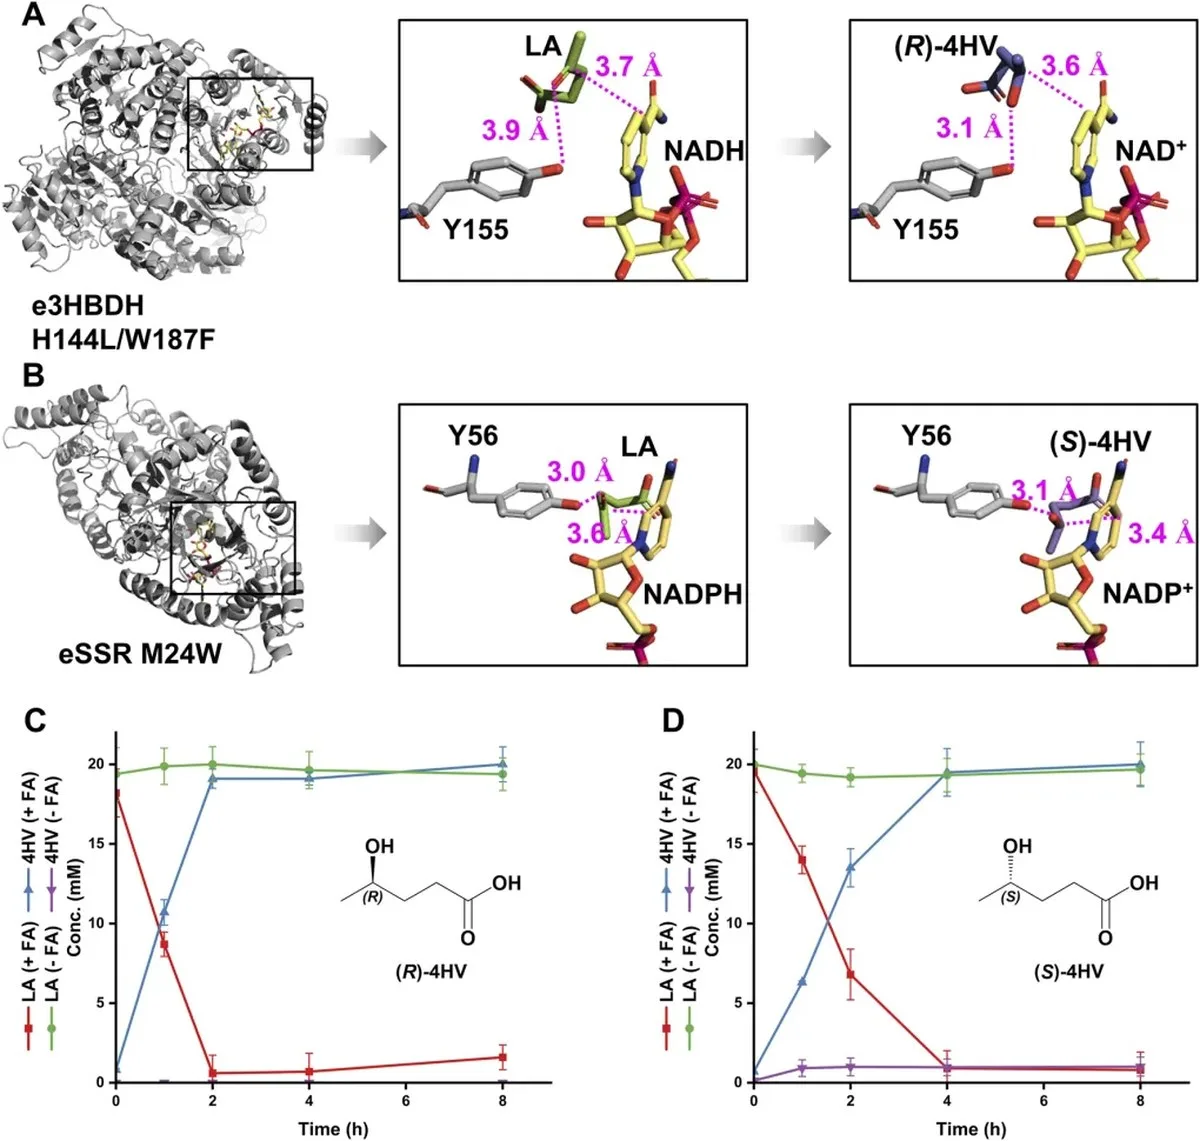
LA indirgenmesi için iki stereokomplementer redüktaz değerlendirildi: e3HBDH H144L/W187F ve eSSR M24W. Önceden belirlenmiş stereotercihleriyle uyumlu olarak (Yeon et al., 2013; Lee and Yeon, 2020), docking LA’yı iki aktif bölgede karşıt prokiral yönelimlerde konumlandırdı. e3HBDH’de LA’nın karbonil oksijeni Y155’e, karbonil karbonu ise NADH nikotinamid halkasına doğru yönelirken, eSSR LA’yı NADPH ve Y56’ya göre karşıt bir yönelimde konumlandırdı (Şekiller 2A,B). İlgili 4HV ürünlerinin docking’leri bu yönelimlerle tutarlı pozlar verdi; bu modeller bağımsız bir stereoselektivite kanıtı olarak değil, niteliksel bir yapısal bağlam olarak kullanıldı.
ŞEKİL 2
LA ve karşılık gelen tercih edilen 4HV ürününün docking skorları e3HBDH’de sırasıyla −8,48 ve −6,00 kcal mol⁻¹, eSSR’de ise sırasıyla −6,08 ve −4,76 kcal mol⁻¹ olarak bulundu (Şekiller 2A,B). Karşıt 4HV enantiomeriyle tamamlayıcı denemelerde, e3HBDH’de (S)-4HV ve eSSR’de (R)-4HV, aynı verimli aktif bölge geometrisi kriterlerini karşılayan pozlar üretmedi. Bu karşılaştırma, deneysel olarak belirlenmiş karşıt stereotercihlerle tutarlıdır; ancak docking bağımsız olarak stereoselektivite ya da bir reaksiyon mekanizmasını kanıtlamaz.
E(R)-modülü FDH ile eşleştirildiğinde LA’yı 2 saat içinde %91,8 verimle (R)-4HV’ye dönüştürürken, E(S)-modülü eFDH ile eşleştirildiğinde LA’yı 4 saat içinde %96,1 verimle (S)-4HV’ye dönüştürdü (Şekiller 2C,D). Böylece redüktaz/kofaktör rejenerasyon dalının değiştirilmesi, aynı substratı iki 4HV enantiomerinden birine yönlendirdi.
Verimli hücre içi indirgenme için formik asidin (FA) mevcut olması gerekiyordu. FA’nın olmadığı durumda LA’dan (R)-4HV dönüşümü ihmal edilebilir düzeydeyken, (S)-4HV dönüşümü yaklaşık %5,2’ye ulaştı (Şekiller 2C,D). Bu kontroller, FDH- veya eFDH-araçlı kofaktör rejenerasyonunun, yalnızca endojen indirgen eşdeğerlerinden çok daha etkili LA indirgenmesini desteklediğini gösteriyor. Ayrıca bu reaksiyonlarda GVL tespit edilmedi; bu da indirgenme/kofaktör rejenerasyon modüllerinin tek başına algılanabilir düzeyde GVL oluşumu için yeterli olmadığını ortaya koyuyor.
3.2 ePON1 ile ilişkili laktoneşme ve perizmatik hedefleme
ePON1, söz konusu deney koşullarında 4HV laktoneşmesi için değerlendirildi. (R)-4HV ve (S)-4HV için Ca2+-içeren ePON1 aktif bölgesine yönelik docking modelleri, her iki substratı da Ca2+-koordinasyonundan sorumlu E29, N144, N200 ve D245 rezidüleri ile histidin çifti H91/H110’a yakın β-propeller cebinde konumlandırdı (Şekil 3A) (Harel ve ark., 2004; Khersonsky ve Tawfik, 2006). Laktoneşme, stereojenik C4 karbonunun kopmasını gerektirmediğinden, docking analizi her iki 4HV enantiomerinin modellenmiş aktif bölgeyle geometrik uyumunu değerlendirmek amacıyla kullanıldı.
ŞEKİL 3
Saflaştırılmış ePON1 içeren deneylerde, en yüksek GVL konsantrasyonu pH 6,0’da elde edildi; bu koşullarda 20 mM 4HV’den 3 saat sonra 5,0 mM GVL tespit edildi (%25,0 verim). L-modülünü ifade eden bütün hücre deneyleri pH 5,5’te bir tepe gösterdi ve 6,5 mM GVL (%32,5 verim) üretti (Şekil 3B).
Perizmatik hedefleme, 4HV’den oluşan görünüm bütün-hücre GVL oluşumunu değiştirdi. Test edilen N-terminal sinyal dizilerinin arasında en yüksek yanıtı G3C9 sinyal dizisi verdi; bu, sinyal peptidi içermeyen ePON1 yapısına göre 8,2 katlık bir artışa karşılık geliyordu (Şekil 3C).
3.3 Modüler kaskadın ticari levulinik asitle bütünleştirilmesi
Redüktaz, ko-faktör rejenerasyonu ve laktonizasyon modülleri önce hücre içi reaksiyonlarda birleştirildi (Şekiller 4A,B). Her iki stereokimyasal yolda da GVL oluşumundan önce 4HV birikti. Maksimum GVL konsantrasyonları (R)-yol için 5,4 mM ve (S)-yol için 2,3 mM olup buna karşılık gelen verimler sırasıyla 27,0% ve 11,5% idi. Tüm hücreli LA indirgemeyi exojen olarak sağlanan saflaştırılmış ePON1 ile birleştiren hibrit konfigürasyon, (R)-yol için 37,5% ve (S)-yol için 34,1% toplam GVL verimi sağladı (Ek Şekil S1). Tek kaplı tüm hücreli konfigürasyonda E−, C- ve L-modülleri aynı konak hücrede ko-ifade edildi (Şekiller 4C,D). (R)-yolda LA 2 saat içinde tükenmiş, 4HV 1–2 saatte 8,8 mM’ye, GVL ise 8 saatte 12,9 mM’ye ulaşmış ve buna 64,5% verim karşılık vermiştir. (S)-yolda GVL 8 saatte 10,4 mM’ye ulaşmış ve buna 52,0% verim karşılık vermiştir. GC–MS analizi, GVL ürünlerinin kimliğini ayrıca desteklemiştir (Ek Şekiller S3–S5).
ŞEKİL 4
Gerçek (R)- ve (S)-GVL standartlarından hazırlanmış ekvimolar rasemik bir referans ile E(R)- ve E(S)-yollardan elde edilen reaksiyon ürünleri kullanılarak yapılan kiral GC analizleri, rasemik referansta iki temel çözünürlüklü pik (Rs = 2,08) ve her iki ürün kromatogramında da karşıt enantiomerle karşılık gelen belirgin bir pik göstermemiştir (Ek Şekil S2). Tekrarlanan kromatogramlar yaklaşık 11,99 ve 12,06 min retansiyon zamanlarıyla kaydedilmiştir. Kromatogramlar, 99,9%’den yüksek enantiopürite ile tutarlıdır; ancak ee için katı bir alt sınır belirlemek için bağımsız olarak doğrulanmış eser enantiomer algılama sınırı gereklidir.
3.4 Biyokütle kaynaklı levülinik asit akımlarının hazırlanması
LA içeren akışlar, ham BSG, NaOH ile ön işlem görmüş BSG ve kitosan kullanılarak ayrı bir kimyasal ön işlem adımı olarak MSA katalizörlüğünde hidrotermal dönüşüm ile hazırlandı. BSG ve kitosan, birbirini tamamlayan gıda endüstrisinden elde edilen hammadde olarak seçildi: BSG, bitkisel kökenli lignoselülozik bir bira atığı iken, kitosan deniz ürünleri atığından elde edilen azot içeren bir biyopolimerdir.
Ham BSG, 12,5% (w/w) BSG yüklemesi, 0,75 M MSA, 170 °C ve 40 dk koşullarında 18,30 g L−1 LA ve 10,63 g L−1 FA verdi (Tablo 1). İz konsantrasyonunda 5-HMF tespit edildi. NaOH ile ön işlem görmüş BSG, aynı MSA dönüşüm koşullarında 17,00 g L−1 LA ve 9,45 g L−1 FA üretti.
TABLE 1
| Hammadde | FA (g L−1) | LA (g L−1) | 5-HMF (g L−1) | Asetik asit (g L−1) | Furfural (g L−1) | Glukoz (g L−1) | XMG (g L−1) | Arabinoz (g L−1) |
|---|---|---|---|---|---|---|---|---|
| Ham BSG | 10,63 ± 0,08 | 18,30 ± 0,08 | 0,08 ± 0,01 | 1,20 ± 0,01 | ND | ND | 2,00 ± 0,13 | 0,44 ± 0,01 |
| NaOH ile ön işlem görmüş BSG | 9,45 ± 0,05 | 17,00 ± 0,31 | 0,27 ± 0,03 | ND | 0,09 ± 0,01 | ND | 0,30 ± 0,01 | 0,20 ± 0,01 |
| Kitosan | 9,45 ± 0,03 | 23,28 ± 0,16 | 0,50 ± 0,04 | 5,27 ± 0,02 | ND | ND | ND | 0,34 ± 0,03 |
Metansülfonik asit kullanılarak BSG ve kitosan’ın levülinik asite dönüşümünden sonra ürün dağılımı.
Değerler ortalama ± SD (n = 3) olarak sunulmuştur. ND, belirlenmedi; XMG, ksiloza/manoz/galaktoz.
Kitosan dönüşümü, test edilen hammadleler arasında en yüksek LA konsantrasyonunu verdi: 10,0% (w/w) kitosan ve 1,0 M MSA’dan 200 °C’de 15 dk içinde 23,28 g L−1 LA ve 9,45 g L−1 FA üretildi. Kitosandan elde edilen akış aynı zamanda 5,27 g L−1 asetik asit de içeriyordu.
3.5 Biyokütleden elde edilen levülinik asit akışlarının hücre içi dönüşümü
Üç biyokütle kaynaklı LA akışı, ticari LA yerine hücre bütünü dönüştürme sisteminde kullanıldı (Şekil 5). Dışarıdan sodyum formiat ya da CaCl2 eklenmedi; ancak MSA katalizli biyokütle dönüştürme sırasında formik asit (FA), LA ile birlikte yan ürün olarak oluştu ve reaksiyon akışlarında kaldı. Ham-BSG, NaOH ile ön işlem görmüş-BSG ve kitosan kaynaklı akışlar, LA’ya göre sırasıyla yaklaşık 1,47, 1,40 ve 1,03 mol eşdeğeri FA içeriyordu. Böylece biyokütle kaynaklı akışlar, FDH bağımlı nikotinamid koenzim yeniden oluşumu için formatı içsel olarak yaklaşık stokiyometrik ya da mütevazı artı düzeylerde sağladı ve hücre bütünü kaskadının harici format takviyesi olmadan işlemesi mümkün oldu.
ŞEKİL 5
Bu koşullar altında LA, üç besin akışı arka planının tümünde 4HV ve GVL’ye dönüştürüldü. 8 saatin sonunda, ham-BSG kaynaklı akış, E(R) ve E(S) yollarıyla sırasıyla yaklaşık 32,6% ve 67,1% GVL verimleri sağladı. NaOH ile ön işlem görmüş-BSG akışı yaklaşık 26,1% ve 52,9%, kitosan kaynaklı akış ise karşılık gelen yollarla yaklaşık 38,3% ve 70,0% verim sağladı (Şekil 5). Bu sonuçlar, biyokütle kaynaklı akışlarda yan ürün olarak oluşan FA’nın, LA indirgenmesi için gerekli indirgeyici eşdeğerleri destekleyebileceğini ve ticari-LA reaksiyonlarında kullanılan 60 mM sodyum formata ihtiyaç ortadan kaldırdığını gösteriyor.
Biomass kaynaklı reaksiyonlarda E(R) yolunu kullananlarda biyokütle içinde rezidüel LA gözlemlenirken, karşılık gelen ticari-LA reaksiyonunda ve E(S)-yol reaksiyonlarında LA saptanmadı. Bu farka katkıda bulunmuş olabilecek faktörlerden biri, biomass kaynaklı reaksiyonlarda formatın daha az kullanılabilir olmasıydı. Ticari-LA reaksiyonu 20 mM LA başına 60 mM sodyum format içerirken, biomass kaynaklı akışlar yalnızca yaklaşık 20,5–29,3 mM endojen FA sağladı. Sonuçta oluşan indirgenme-eşdeğeri arzı, dolayısıyla teoretik stokiyometrik gereksinime çok daha yakındı ve ticari-LA sistemine göre daha az bir fazlalık sundu. Bu azalmış marj, toplam dönüşümü daha düşük gösteren E(R) kaskadında LA dönüşümünü E(S) kaskadına göre daha güçlü şekilde etkilemiş olabilir. Aynı zamanda, E(S) yolu aynı besleme akışı koşullarında neredeyse tamamına yakın LA tüketimi sağladığından, format kullanılabilirliği tek başına rezidüel LA’yı açıklayamaz. Besleme akışına özgü bileşenler ve iki redüktaz modülünün ile FDH ile eFDH’nin toleransı veya katalitik performansları arasındaki farklar da farklı dönüşüm profillerine katkıda bulunmuş olabilir.
Saflaştırılmış enzim bileşen taramasında, 5-HMF, asetik asit, furfural ve arabinoz varlığında görülen belirgin eSSR aktiviteleri, inhibitörsüz kontrolün sırasıyla yaklaşık %62, %41, %46 ve %51’i kadardı. Buna karşılık, karşılık gelen belirgin e3HBDH aktiviteleri kontrolün yaklaşık %134, %114, %126 ve %131’i kadardı (Ek Figure S6). Bu enzim-özlü tepkiler, bileşen hassasiyetine dair kanıt sağlar ancak bireysel bileşenlerin hücre-bütün GVL verimlerine katkılarını izole etmez.
4 Tartışma
Bu çalışma, LA’nın enantiyözel GVL’ye stereodivergent dönüşümü için modüler bir hücre-tüm platform sunar. Temel ilerleme, stereodestekleyici LA-indirgeme modüllerinin kofaktör rejenerasyonu ve laktonezasyon ile yaygın bir hücresel çerçeve içinde bütünleştirilmesinde yatmaktadır. Bireysel katalitik işlevlerin öncülleri mevcuttur: Mühendislik uygulanmış 3HBDH ve SSR varyantları daha önce stereoselektif LA indirgeme için geliştirilmiştir (Yeon et al., 2013; ), e3HBDH varyantı kemoenzimatik (R-)GVL sentezinde kullanılmıştır (Lee and Yeon, 2020). PON1-aracılı hidroksi-asit laktonezasyonu da bildirilmiştir (Teiber et al., 2003; Martin et al., 2010); ancak bu çalışmalarda GVL’nin kiralitesi rapor edilmemiştir. İlgili organokatalitik ve enzimatik yaklaşımlar benzer şekilde diğer enantiyözlü laktönlere erişim sağlamıştır (Wu et al., 2011; Classen et al., 2014; Robescu et al., 2022). Bu çalışmada dikkat çeken sonuç, LA’nın tek bir modüler hücre-tüm platform aracılığıyla GVL’nin her iki antipoduna doğrudan stereodivergent biçimde dönüştürülmesidir. Bu sistemde bu işlevler değiştirilebilir modüller olarak düzenlenmiştir; böylece stereoselektif indirgeme/kofaktör rejenerasyonu dalının değiştirilmesi, aynı hücre-tüm platformu GVL’nin herhangi bir antipoduna yönlendirmiştir. Ürün kiralitesinin bu modüler kontrolü, yeni bir temel reaksiyonun keşfinden çok, bu kaskadın başlıca ayrıştıran özelliğini temsil etmektedir.
İndirgeme adımında sağlanan stereo-kimyasal kontrol, bütünleşik kaskad boyunca korundu. E(R)-modülü, FDH ile eşleştirildiğinde %91,8 verimde (R)-4HV üretirken, E(S)-modülü eFDH ile eşleştirildiğinde %96,1 verimde (S)-4HV üretti. E−, C- ve L-modülleri tek bir konak hücrede birlikte ifade edildiğinde, tek kap reaksiyonları 20 mM LA’dan 12,9 mM (R)-GVL ve 10,4 mM (S)-GVL üretmiş; her iki ürün için de %99,9’dan fazla enantiomerik saflık (ee) sağlanırken, verimler sırasıyla %64,5 ve %52,0 olmuştur. Hücre bütünü konfigürasyonu, bu çalışmada incelenen karşılık gelen hücre-sız ve hibrit formatlara göre daha yüksek GVL oluşumu sağlamıştır. Bu sonuçlar birlikte, LA indirgenmesi sırasında girilen stereo-kimyasal bilginin son laktone ürüne verimli biçimde aktarılabileceğini ve indirgeyici/kofaktör-regenerasyon dalının modüler değişiminin tüm yolak üzerindeki stereo-kimyasal sonucu değiştirmek için yeterli olduğunu göstermektedir.
Basamak basamak deneyler, aynı zamanda ePON1 içeren laktoneleştirme modülünün katkısına ilişkin işlevsel kanıtlar da sunmaktadır. İlk hücre bütünü indirgeme deneylerinde, stereoselektif indirgeyici ve kofaktör-regenerasyon modüllerini içeren hücreler LA’yı 4HV’ye dönüştürmüş, ancak PON1’in bulunmaması durumunda algılanabilir düzeyde GVL oluşmamıştır. Buna karşılık, ePON1 içeren L-modülü kaskada dahil edildiğinde GVL oluşumu gözlemlenmiştir. Bu sonuç, indirgeyici/kofaktör-regenerasyon modüllerinin tek başına kullanılan koşullar altında algılanabilir düzeyde GVL oluşumu için yeterli olmadığını ve ePON1’in 4HV’den GVL adımında işlevsel bir rol üstlendiğini göstermektedir. Bu yorumla tutarlı biçimde, ePON1’in perizmatik (hücre zarı ile hücre duvarı arasındaki bölge) hedeflemesi, hedeflenmemiş yapılandırmaya göre 8,2 katlık bir artış sağlayarak hücre bütününden 4HV üzerinden GVL oluşumunu belirgin biçimde artırmıştır. Dolayısıyla hem basamak basamak modül karşılaştırması hem de lokalizasyon deneyi, mühendislik yoluyla oluşturulan hücre bütünü sisteminde L-modülünün üretken laktoneleştirmedeki katkısını desteklemektedir.
Laktonizasyon adımının pH bağımlılığı, PON1 için önceki biyokimyasal gözlemlerle de uyumluydu. Teiber ve ark. (2003), PON1 katalizeli hidroksi-asid/lakton dönüşümünü pH 5,5–6 civarında en yüksek laktonizasyon aktivitesiyle bildirmiş; Martin ve ark. (2010) ise sitozol dışı PON1 aracılı 4HV’nin 4-valerolaktona dönüşümünü göstermiştir. Bu çalışmada, saflaştırılmış ePON1 içeren reaksiyonlar pH 6,0’da en yüksek GVL oluşumu gösterirken, L-modülünü ifade eden bütün hücreli reaksiyonlar pH 5,5’te bir maksimum gösterdi. 20 mM 4HV’den elde edilen karşılık gelen 5,0 ve 6,5 mM GVL konsantrasyonları, hidroksi-asid/lakton dönüşümünün bilinen denge davranışıyla uyumludur. Buna göre, entegre kaskette 4HV’nin sürmesi, geri döndürülebilir bir laktonizasyon adımıyla uyumlu olup bu modülü genel dönüşümün daha da iyileştirilmesi için önemli bir hedef olarak işaret eder.
4HV ve GVL, geri döndürülebilir, pH’a bağımlı hidroksi-asid/lakton dönüşümüne tabi olduğundan, denge ürün fraksiyonu reaksiyon pH’ından güçlü biçimde etkilenir (Teiber ve ark., 2003; Martin ve ark., 2010). 8. saatte GVL, sırasıyla bütün hücreli E(R)- ve E(S)-yol reaksiyonlarında ölçülen 4HV + GVL havuzlarının yaklaşık %68’i ve %60’ını temsil ederek, geri kalan 4HV’ye eksik laktonizasyonun, yalnızca yetersiz LA indirgenmesinden çok katkıda olduğunu gösterdi. ePON1’in, pH ile tanımlanan dengeye yaklaşımı hızlandırması beklenmekle birlikte, yalnızca katalizisle termodinamik dengeyi yerinden edemez. Bütün hücreli yapıda, hücresiz konfigürasyona göre daha yüksek GVL üretimi, test edilen koşullar altında gözlemlenen bütüncül sınırlamanın hücre içi kütle iletimi olduğunu göstermez.
Mevcut çalışmanın bir diğer özelliği de, aynı bütün-hücre çerçevesinin bira fabrikası atığından (BSG) ve kitozandan elde edilen LA içeren akışkanlara uygulanmasıdır. Metansülfonik asitle katalizlenen hidrotermal muamele ile LA’nın ön üretim aşaması kimyasal bir ön muamele basamağıdır ve aşağı yöndeki biokatalitik LA’den GVL dönüşümünden farklıdır. Yine de, test edilen üç akışkanın tamamı—ham BSG kaynaklı, NaOH ile ön muamele edilmiş BSG kaynaklı ve kitozandan kaynaklı—hem 4HV hem de GVL oluşumunu desteklemiştir. GVL verimleri, ham BSG ile (S)-yolu için %67,1’e, kitozandan kaynaklı akışkan ile %70,0’ye ulaşmıştır. Önemli olanı, bu reaksiyonlar seyreltilmiş biyokütle kaynaklı akışkanların kimyasal ortamında ekogenik sodyum format veya CaCl2 kullanılmadan ilerlemiştir ve bu da modüler bütün-hücre katalizörlerinin bu ortamda aktivitesini koruduğunu göstermektedir. Bu sonuçlar, kaskadın yalnızca saflaştırılmış ticari LA ile sınırlı olmadığını ve stereoseçici biokatalizi yukarı yöndeki biyokütle değerlendirme süreçleriyle birleştirmedeki potansiyelini göstermektedir.
Bileşen tarama sonuçları, biyokütle kaynaklı bileşenlerin stereokomplementer redüktazları farklı şekilde etkileyebileceğini göstermiştir; özellikle asetik asidin varlığında görünür eSSR aktivitesinde belirgin bir azalma gözlemlenmiştir. Yine de izole redüktaz deneyleri, net bütün-hücre akışını ölçmez ve format dehidrogenaz aktivitesi, substrat taşınması, ortam pH’ı ve ePON1’e yönelik olası etkiler hâlâ çözülmemiştir (Ek Figure S6). Biyokütle kaynaklı akışkanlarla (S)-yol, in vitro eSSR aktivitesi deneyinde gözlemlenen inhibisyonun aksine, ticari LA reaksiyonundan daha yüksek verim göstermiştir.
8. saat sonundaki GVL konsantrasyonları 12,9 ve 10,4 mM olup sırasıyla 1,29 ve 1,04 g L−1’e karşılık gelmekte; hücre yüklemesi 150 g L−1 ıslak hücre ağırlığına ulaşıldığında uç-nokta ortalamalı hacimsel ürün verimlilikleri yaklaşık 0,161 ve 0,130 g L−1 h−1’dir. Bu değerler sırasıyla partibaşı başına yaklaşık 8,6 ve 6,9 mg GVL g−1 ıslak hücreye karşılık gelmekte ve dönüşüm-normalize edilmiş enzim verimlilikleri gibi yorumlanmamalıdır. Daha yüksek başlangıç LA yüklemeleri (20, 50 ve 100 mM) ile yürütülen keşif niteliğindeki bütün hücre deneylerinde, LA konsantrasyonunun artması sürdürülebilir GVL üretimini orantılı biçimde artıramadı; bu durum substrata bağlı inhibisyon ya da daha geniş reaksiyon kısıtlamalarıyla uyumludur. Dolayısıyla daha düşük hücre yüklemesi, aşamalı substrat beslemesi ve katalizör geri kazanımı ya da yeniden kullanımı daha fazla optimizasyon gerektirmektedir. İmmobilizasyon ve sürekli akışlı biokataliz, operasyonel yeniden kullanımını iyileştirmeye yönelik yerleşik yaklaşımlar sunmakla birlikte, bu çalışmada değerlendirilmedi (Tang ve ark., 2024).
Mevcut reaksiyon koşulları, nihai bir süreç penceresi tanımlamak yerine modüler kavramın uygulanabilirliğini ortaya koymak amacıyla seçildi. LA konsantrasyonlarının artırılması, bütün hücre yüklemelerinin azaltılması ve bireysel modüllerin ifadesinin oranlarının ayarlanmasıyla yapılacak sonraki optimizasyonlar titer ve katalizör verimliliğini iyileştirmeye yardımcı olmalıdır. Dolayısıyla bu çalışma, optimize edilmiş yüksek titer biyokütleden GVL’ye dönüştürme sürecinden çok, modüler stereo kontrolü ve besleme akışı uyumluluğu için bir kavram kanıtı olarak konumlandırılmaktadır. Hazırlıklı ölçekli ürün izole edilmesi ve geri kazanımı, iki enantiomerik ürünün pratik değerinin değerlendirilmesinde ayrıca yararlı olacaktır. Bu çalışmalar, burada gösterilen merkezi bulguya dayanarak süreç geliştirmenin bir sonraki aşamalarını temsil etmektedir: ortak bir bütün hücre mimarisi, indirgeme/kofaktör yenileme modulünün değiştirilmesiyle birbirini tamamlayan stereo kimyasal çıktılar arasında değiştirilebilir.
Özetle bu çalışma; LA indirgenmesi, kofaktör rejenerasyonu ve 4HV laktonezasyonu tek bir modüler hücre içi kaskade entegre eden stereodivergent bir biokatalitik strateji ortaya koyar. Aynı alt maddeenden >%99,9 ee ile hem (R)- hem de (S)-GVL üretme yeteneği, kaskadın seyreltilmiş biyokütle kaynaklı LA akışlarında gösterilen işlevsellikle birleşince, bu sistemi yalnızca tek bir stereo kimyasal ürüne ya da saflaştırılmış alt maddeye indirgenmiş yollardan ayırır. Modüler tasarım, daha ileri optimizasyon için esnek bir temel sağlarken, yenilenebilir karbon kaynaklarından stereo seçici hücre içi yükseltme yollarının daha geniş ölçekte geliştirilmesine de olanak tanır.
5 Sonuç
Modüler Escherichia coli hücre içi kaskade, LA’nın her iki GVL antipoduna tek kapta stereodivergent şekilde dönüştürülmesini sağladı; (R)- ve (S)-GVL verimleri sırasıyla %64,5 ve %52,0 olurken her iki üründe de >%99,9 ee elde edildi. Perizmatik yönlendirme, 4HV’den GVL oluşumunu belirgin biçimde ePON1 ile ilişkili şekilde 8,2 kat artırdı; indirgeyici/enzim kofaktör rejenerasyonu modülünün değiştirilmesi ise ürünün stereo kimyasını kontrol etti. Biyokütle kaynaklı LA/format akışları, exojen format takviyesi olmaksızın GVL oluşumunu destekledi ve kofaktör rejenerasyonu için doğrudan co-üretilen biyokütle kaynaklı formatın kullanımını gösterdi. Bu bulgular, yenilenebilir LA’nın stereo seçici yükseltilmesi için esnek bir çerçeve sunar; daha yüksek alt madde yüklemesi ve daha düşük katalizör yüklemesi düzeyinde gelecekteki optimizasyonlar ile ürün geri kazanımı çalışmalarının süreç uygulama süreci daha da ilerletebilir.
Açıklamalar
Veri erişim açıklaması
Bu makalenin sonuçlarını destekleyen ham veriler, gereksiz bir sakınma olmaksızın yazarlar tarafından sağlanacaktır.
Yazar katkıları
H-SL: Kavramlaştırma, Veri düzenleme, Biçimsel analiz, Araştırma, Metodoloji, Görselleştirme, Orijinal metin yazımı. SN: Veri düzenleme, Araştırma, Metodoloji, Orijinal metin yazımı. HJ: Veri düzenleme, Doğrulama, Orijinal metin yazımı. JO: Veri düzenleme, Araştırma, Orijinal metin yazımı. G-TJ: Metodoloji, Kaynaklar, Yönetim, Metin düzenleme ve inceleme yazımı. Y-TP: Finansman sağlama, Kaynaklar, Yönetim, Metin düzenleme ve inceleme yazımı. YY: Kavramlaştırma, Finansman sağlama, Proje yönetimi, Yönetim, Metin düzenleme ve inceleme yazımı.
Fismanma
Sorumlu yazar(lar), bu çalışmanın ve/veya yayımının finansal destek aldığını beyan etti. Bu çalışma, Güney Kore Ticaret, Sanayi ve Kaynaklar Bakanlığı (MOTIR) tarafından finanse edilen Teknoloji Yenilik Programı (RS-2024-00488503) ile Güney Kore Eğitim Bakanlığı ve Gangwon Eyaleti tarafından finanse edilen Gangwon ANCHOR Merkezi aracılığıyla ANCHOR Programı (2026-ANCHOR-10-004) tarafından desteklenmiştir.
Çıkar çatışması
Sorumlu yazar(lar), bu çalışmanın ticari veya olası bir çıkar çatışması biçiminde değerlendirilebilecek herhangi bir ticari ya da finansal ilişki olmadan yürütüldüğünü beyan etti.
Üretken yapay zeka bildirimi
Sorumlu yazar(lar), bu metnin hazırlanmasında üretken yapay zeka kullanıldığını beyan etti. Metnin hazırlanması sırasında yazarlar, İngilizce dil düzenlemesi için ChatGPT (OpenAI, web sürümü, Eylül 2026’da erişildi; model GPT-5.6 Sol; https://chatgpt.com) kullandı.
Bu makaledeki figürlerle birlikte sağlanan alternatif metin (alt text) Frontiers tarafından yapay zeka desteğiyle oluşturulmuş olup, mümkün olduğunca yazarların incelemesini de içeren doğruluğu güvence altına almak için makul çabalar gösterilmiştir. Herhangi bir sorun tespit ederseniz, lütfen bizimle iletişime geçin.
Yayıncının notu
Bu makalede ifade edilen tüm görüşler yalnızca yazarlara aittir ve bağlı oldukları kuruluşların, yayıncının, editörlerin veya hakemlerin görüşlerini zorunlu olarak yansıtmaz. Bu makalede değerlendirilebilecek herhangi bir ürün veya üreticisinin yapabileceği herhangi bir iddia, yayıncı tarafından garanti edilmez veya desteklenmez.
Tamamlayıcı malzeme
Bu makalenin tamamlayıcı malzemesine çevrimiçi olarak şu adresten ulaşılabilir: https://www.frontiersin.org/articles/10.3389/fbioe.2026.1998859/full#supplementary-material
-
AbdelraheemE.KuijpersR.HagedoornP.-L.HollmannF.HanefeldU. (2024). Laktön sentezi için DERA ve ADH’ enzimatik kaskadı. Catal. Sci. Technol.14, 2739–2751. 10.1039/D4CY00047A
- CrossRef
- Google Scholar
- Makalede referansı gör
-
AbramsonJ.AdlerJ.DungerJ.EvansR.GreenT.PritzelA.et al (2024). Biomoleküler etkileşimlerin doğru yapısal tahmini: AlphaFold 3. Nature630, 493–500. 10.1038/s41586-024-07487-w
- Pubmed Abstract
- CrossRef
- Google Scholar
- Makalede referansı gör
-
AharoniA.GaidukovL.YagurS.TokerL.SilmanI.TawfikD. S. (2004). Bakteriel ifade ve katalitik özelleşme için memeli paraoksonazları PON1 ve PON3’ün yönlendirilmiş evrimi. Proc. Natl. Acad. Sci. U. S. A.101, 482–487. 10.1073/pnas.2536901100
- Pubmed Abstract
- CrossRef
- Google Scholar
- Makalede referansı gör
-
AlonsoD. M.WettsteinS. G.DumesicJ. A. (2013). Lignoselülozik biyokütleden elde edilen sürdürülebilir bir platform molekülü: gamma-valerolaktón. Green Chem.15, 584–595. 10.1039/C3GC37065H
- CrossRef
- Google Scholar
- Makalede referansı gör
-
ChaJ.ChoiY.SungC.KimM.ParkW. K.MinK. (2025). Bio-mitigation of CO2: the co-production of phycocyanin and optically pure (R)-γ-valerolactone with perfect enantiomeric excess. Bioresour. Technol.418, 131895. 10.1016/j.biortech.2024.131895
- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
ChenX.YangH.YanN. (2016). Shell biorefinery: dream or reality?Chem. Eur. J.22, 13402–13421. 10.1002/chem.201602389
- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
ClassenT.KorpakM.SchölzelM.PietruszkaJ. (2014). Stereoselective enzyme cascades: an efficient synthesis of chiral γ-butyrolactones. ACS Catal.4, 1321–1331. 10.1021/cs5000262
- CrossRef
- Google Scholar
-
de CarvalhoC. C. C. R. (2017). Whole cell biocatalysts: essential workers from nature to the industry. Microb. Biotechnol.10, 250–263. 10.1111/1751-7915.12363
- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
DengC.-Q.LiuJ.LuoJ.-H.GanL.-J.DengJ.FuY. (2022). Proton-promoted nickel-catalyzed asymmetric hydrogenation of aliphatic ketoacids. Angew. Chem. Int. Ed.61, e202115983. 10.1002/anie.202115983
- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
HarelM.AharoniA.GaidukovL.BrumshteinB.KhersonskyO.MegedR.et al (2004). Structure and evolution of the serum paraoxonase family of detoxifying and anti-atherosclerotic enzymes. Nat. Struct. Mol. Biol.11, 412–419. 10.1038/nsmb767
- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Hijazi A. K., Khalaf N., Kwapinski W., Leahy J. J. (2022). Catalytic valorisation of biomass levulinic acid into gamma valerolactone using formic acid as a H2 donor: a critical review. RSC Adv. 12, 13673–13694. 10.1039/D2RA01379G
- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Hoque M. M., Shimizu S., Juan E. C. M., Sato Y., Hossain M. T., Yamamoto T. et al (2009). Structure of D-3-hydroxybutyrate dehydrogenase prepared in the presence of the substrate D-3-hydroxybutyrate and NAD+. Acta Crystallogr. Sect. F. Struct. Biol. Cryst. Commun. 65, 331–335. 10.1107/S1744309109008537
- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Ihara M., Kawano Y., Urano M., Okabe A. (2013). Light driven CO2 fixation by using cyanobacterial photosystem I and NADPH-dependent formate dehydrogenase. PLoS One 8, e71581. 10.1371/journal.pone.0071581
- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Ikram S., Huang L. Y., Zhang H., Wang J., Yin M. (2017). Composition and nutrient value proposition of brewers spent grain. J. Food Sci. 82, 2232–2242. 10.1111/1750-3841.13794
- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Khersonsky O., Tawfik D. S. (2006). The histidine 115-histidine 134 dyad mediates the lactonase activity of mammalian serum paraoxonases. J. Biol. Chem. 281, 7649–7656. 10.1074/jbc.M512594200
- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Lee D., Yeon Y. J. (2020). Enantioselective chemoenzymatic synthesis of (R)-γ-valerolactone from levulinic acid. Process Biochem. 90, 113–117. 10.1016/j.procbio.2019.11.019
- CrossRef
- Google Scholar
- View reference in article
-
Liu, Y., O’Connell, A., Rolfes, J. D., Deska, J. (2025). Hidrojen ödün verme biokatalizi ile 2-hidroksipiranonların asimetrik halka büzüşmesi. Chem. Sci. 16, 17667–17674. 10.1039/D5SC02591E
- CrossRef
- Google Scholar
- Kaynağa bak
-
Lynch, K. M., Strain, C. R., Johnson, C., Patangia, D., Stanton, C., Koc, F., et al. (2021). Bira atığından arabinoksilanın çıkarılması ve karakterizasyonu ile mikrobiyom modülasyon potansiyelinin incelenmesi. Eur. J. Nutr. 60, 4393–4411. 10.1007/s00394-021-02570-8
- Pubmed Abstract
- CrossRef
- Google Scholar
- Kaynağa bak
-
Martin, C. H., Wu, D., Prather, K. L. J. (2010). pH’a bağlı olarak 4-valerolakton üretimi için Pseudomonas putida KT2440’ta entegre biyoproses. Appl. Environ. Microbiol. 76, 417–424. 10.1128/AEM.01769-09
- Pubmed Abstract
- CrossRef
- Google Scholar
- Kaynağa bak
-
Robescu, M. S., Cendron, L., Bacchin, A., Wagner, K., Aleotti, M., Bergantino, E., et al. (2022). Stereokomplementari eski sarı enzimlerle C=C bağı izomerizasyon reaksiyonu için asimetrik proton transfer katalizi. ACS Catal. 12, 7396–7405. 10.1021/acscatal.2c01110
- CrossRef
- Google Scholar
- Kaynağa bak
-
Tang, Z., Oku, Y., Matsuda, T. (2024). Verimli sentez için akış biokatalizinde sabitlenmiş enzimlerin uygulaması. Org. Process Res. Dev. 28, 1308–1326. 10.1021/acs.oprd.3c00405
- CrossRef
- Google Scholar
- Kaynağa bak
-
Teiber, J. F., Draganov, D. I., La Du, B. N. (2003). İnsan serumu paraoksonez (PON1) ve tavuk serumu PON3’ün laktonaz ve laktonlaştırıcı aktiviteleri. Biochem. Pharmacol. 66, 887–896. 10.1016/S0006-2952(03)00401-5
- Pubmed Abstract
- CrossRef
- Google Scholar
- Kaynağa bak
-
Tonoli, A., Wagner, K., Bacchin, A., Reiter, T., Bergantino, E., Robescu, M. S. ve ark. (2023). Tek kademeli kaskette α-angelika laktonun (R)- ve (S)-γ-valerolaktona stereodivergent biokatalitik formal indirgenmesi. ChemBioChem 24, e202300146. 10.1002/cbic.202300146
- Pubmed Özeti
- CrossRef
- Google Scholar
- Makalede kaynağı görüntüle
-
Tukács, J. M., Fridrich, B., Dibó, G., Székely, E., Mika, L. T. (2015). Levülinik asidin gamma-valerolaktona doğrudan asimetrik indirgenmesi: kiral bir platform molekülünün sentezi. Green Chem. 17, 5189–5195. 10.1039/C5GC01099C
- CrossRef
- Google Scholar
- Makalede kaynağı görüntüle
-
Wachtmeister, J., Rother, D. (2016). Araştırma ölçeğinden endüstriyel ölçeğe köprü kuran hücre bütün biokataliz tekniklerinde son gelişmeler. Curr. Opin. Biotechnol. 42, 169–177. 10.1016/j.copbio.2016.05.005
- Pubmed Özeti
- CrossRef
- Google Scholar
- Makalede kaynağı görüntüle
-
Wu, Y., Singh, R. P., Deng, L. (2011). Organik bir molekül tarafından proton transfer katalizi aracılığıyla butenolidlerin asimetrik olefin izomerizasyonu. J. Am. Chem. Soc. 133, 12458–12461. 10.1021/ja205674x
- Pubmed Özeti
- CrossRef
- Google Scholar
- Makalede kaynağı görüntüle
-
Xu, R., Liu, K., Du, H., Liu, H., Cao, X., Zhao, X. ve ark. (2020). Düşen yapraklar köküne döner: lignoselülozdan γ-valerolakton hazırlanması ve lignoselülozun dönüştürülmesindeki uygulaması üzerine bir derleme. ChemSusChem 13, 6461–6476. 10.1002/cssc.202002008
- Pubmed Özeti
- CrossRef
- Google Scholar
- Makalede kaynağı görüntüle
-
Yadav, M., Goswami, P., Paritosh, K., Kumar, M., Pareek, N., Vivekanand, V. (2019). Deniz ürünü atıkları: ticari açıdan kullanılabilir kitin/kitosan malzemelerin hazırlanması için bir kaynak. Bioresour. Bioprocess. 6, 8. 10.1186/s40643-019-0243-y
- CrossRef
- Google Scholar
- Makalede kaynağı görüntüle
-
Yeon Y. J, Park H.-Y, Yoo Y. J. (2013). Enzymatic reduction of levulinic acid by engineering the substrate specificity of 3-hydroxybutyrate dehydrogenase. Bioresour. Technol. 134, 377–380. 10.1016/j.biortech.2013.01.078
- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Yeon Y. J, Park H.-Y, Yoo Y. J. (2015). Engineering substrate specificity of succinic semialdehyde reductase (AKR7A5) for efficient conversion of levulinic acid to 4-hydroxyvaleric acid. J. Biotechnol. 210, 38–43. 10.1016/j.jbiotec.2015.06.404
- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Zeko-Pivač A, Tišma M, Žnidaršič-Plazl P, Kulisic B, Sakellaris G, Hao J. et al (2022). The potential of brewer’s spent grain in the circular bioeconomy: state of the art and future perspectives. Front. Bioeng. Biotechnol. 10, 870744. 10.3389/fbioe.2022.870744
- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Zhu X, Lapthorn A. J, Ellis E. M. (2006). Crystal structure of mouse succinic semialdehyde reductase AKR7A5: structural basis for substrate specificity. Biochemistry 45, 1562–1570. 10.1021/bi051610k
- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
Summary
Anahtar Kelimeler
enantiopürite, gıda atıklarının değerlendirilmesi, levülik asit, stereodivergent biokataliz, γ-valerolakton
Başvuru
Lee H-S, Na S, Jang H, Oh J, Jeong G-T, Park Y-T ve Yeon YJ (2026) Fully biocatalytic stereodivergent conversion of levulinic acid to enantiopure γ-valerolactone. Front. Bioeng. Biotechnol. 14:1998859. doi: 10.3389/fbioe.2026.1998859
Kabul Tarihi
15 Eylül 2026
Güncellenmiş
31 Ekim 2026
Kabul Edilmiş
04 Kasım 2026
Yayınlanmış
13 Kasım 2026
Cilt
14 – 2026
Sizwe Ndlovu, North-West University, Güney Afrika
Jiten Yadav, Japonya RIKEN Emergent Matter Science Merkezi
Xinqi Xu, Çin Fuzhou Üniversitesi
© 2026 Lee, Na, Jang, Oh, Jeong, Park ve Yeon.
Bu makale, Creative Commons Atıf Lisansı (CC BY) koşulları altında açık erişimli olarak dağıtılmıştır. Kabul görmüş akademik uygulamalar doğrultusunda, orijinal yazar(lar)ın ve telif hakkı sahib(ler)inin isimlendirilmesi ve bu dergideki orijinal yayının atıf edilmesi şartıyla, diğer platformlarda kullanım, dağıtım veya çoğaltma izinlidir. Bu koşullara uymayan herhangi bir kullanım, dağıtım veya çoğaltma izinlidir.
İletişim: Gwi-Taek Jeong, gtjeong@pknu.ac.kr; Young-Tae Park, pyt1017@kist.re.kr; Young Joo Yeon, yjyeon@kangwon.ac.kr
†
Bu yazarlar bu çalışmaya eşit katkıda bulunmuş ve ilk yazarlığı paylaşmıştır
Bu makalede ifade edilen tüm iddialar yalnızca yazarlara aittir ve mutlaka bağlı oldukları kuruluşların, ya da yayıncının, editörlerin ve hakemlerin görüşlerini yansıtmaz. Bu makalede değerlendirilebilecek herhangi bir ürün veya üreticisinin yapabileceği herhangi bir iddia, yayıncı tarafından garanti edilmez veya desteklenmez.
Bu gelişme hakkında düşüncelerinizi, donanım deneyimlerinizi veya sorularınızı Topluluk Forumumuzda paylaşın.
Foruma Katıl & Yanıtla ➔




İlk yorumu siz yazın
Fikrinizi bir kaynak, soru veya yapıcı karşı görüşle geliştirin.