Orijinal Araştırma Makalesi
Front. Bioeng. Biotechnol., 10 Kasım 2026
Bölüm: Organoidler ve Organ-On-A-Chip
Cilt 14 – 2026 | https://doi.org/10.3389/fbioe.2026.1975503

- PM
P. Mancini 1
- CM
C. Magliaro 1,2
- EB
E. Botte 1,2
-
1. Araştırma Merkezi “E. Piaggio”, Pisa Üniversitesi, Pisa, İtalya
-
2. Bilgi Mühendisliği Bölümü, Pisa Üniversitesi, Pisa, İtalya
Makale ölçütleri
Özet
Giriş:
Biyo mühendisliği toplulukları, ölçekler arasında bireyler arası etkileşimle yönlendirilen davranışsal örüntülerin incelenmesini sağlar. Yine de biyomedisin, bu modelleme çerçevesinden, olası bir arada yaşama ilişkili yanlımlardan fenotipik okumaları korumak için yararlanabilir.
Yöntemler:
Bu kavramı araştırmak için burada sonlu eleman modellerini kullanarak çoklu sferoid sistemlerde oksijen tüketimini inceledik ve bireysel metabolizmanın, sağlanan oksijen seviyelerini belirleyen hücre yapılarının sayısı, boyutu ve uzaysal dağılımı tarafından nasıl etkilendiğini nicelendirdik; böylece bu sistemlerin in vitro (veya in vitro ekosistemleri) için arada yaşamanın güvenilir modellerini oluşturup oluşturamayacağını anladık. Ardından, daha önce geliştirdiğimiz ve metabolik karakterizasyon için katı bir yöntem sunan simüle edilmiş konfigürasyonlardan birini deneysel olarak uyarlayarak, tahmin tutarlılığına dair ilk kanıtı sağladık.
Sonuçlar:
Hesaplama ve deneysel sonuçlar benzer eğilimler gösteriyor. Sayısal tahminlerin sistematik doğrulaması henüz gerçekleştirilmemiş olsa da, bu sonuçlar oksijen tüketiminin yerel erişilebilirlikle yönlendirilen bir modülasyonunu tutarlı biçimde işaret ediyor.
Tartışma:
Bu modeller, hücre-hücre veya organoid-organoid etkileşimi ve bunun genellikle eş zamanlı hücre örneklerinde değerlendirilen in vitro deneylerin – ilaç gelişimi için klinik öncesi testler gibi – nasıl etkilendiğine dair daha iyi bir anlayışın temellerini atabilir; ayrıca heterojenitelerin ve çevresel bozulmaların varlığında kaynak paylaşımının etkisini değerlendirmek için ekolojik bilimlere kadar genişletilebilir.
1 Giriş
Eş yaşama ve kaynak paylaşımı, bireysel davranışları ölçekler boyunca şekillendirmede geniş ölçüde rol almış ve biyolojik topluluklar içinde ortaya çıkan metabolik kalıpları desteklemiştir (Armstrong ve McGehee, 1976; Brown ve ark., 2004; Gause, 1934; Lankau, 2011; Lotka, 1925; Volterra, 1978). Uygun şekilde yeniden ölçeklendirildiğinde, bu kavramlar aynı zamanda hücre sistemlerinde – dokular ve organlar in vivo ya da buna karşılık gelen replikalar in vitro – gözlemlenebilir (Botte ve ark., 2024; ; Magliaro ve ark., 2019a). İlaç testleri için biyoteknolojiler veya sistemik patofizyoloji çalışmalar için biyo-hibrid platformlar tasarlanırken, gerçekten insan açısından ilgili sonuçlar elde etmek için bu kavramlar dikkatle göz önünde bulundurulmalıdır.
Bununla birlikte, bireyler arası etkileşimin belirli derecesinin hücre düzeyinde metabolik dinamikleri ne ölçüde etkilediğine dair nicel araştırmalara yönelik bugüne kadar bir çalışma bildirilmemiştir. Toksikolojik ve ilaç taramaları in vitro genellikle yalnızca bireysel, izole edilmiş biyolojik tekrarlamalardan geldiği yorumlanan verilere dayanır; örneğin izole edilmiş sferoidler veya organoidler. Oysa pratikte bu veriler çoğu zaman birden fazla yapının birlikte büyütüldüğü kültür kuyularından veya rastgele dağıtılmış hücre agregaları gömülü hidrogel tabanlarından oluşur (Choo et al., 2021; Driehuis et al., 2020; Kopper et al., 2019; Molecular Devices, 2026; Vlachogiannis et al., 2018). Böyle sistemlerin bütün olarak ele alınıp çıktının, sanki bileşenleri ayrı ayrı test edilmiş gibi, bireysel bileşenlerin düzeyinde yorumlanması, eşzamanlı bulunmanın ilaç veya kimyasala verilen yanıta olası etkilerini görmezden gelmektedir; bu da doz-yanıt dinamiklerini sapıtarak planlanan değerlendirmeyi bozabilir. Örneğin, Matrigel destek üzerinde düzensiz dağılmış prostat kanseri organoidlerinin konumsal yerleşiminin, kemoterapötik ajanlara yönelik karakteristik yanıt sürelerini temel düzeyde değiştirdiği öne sürülmüş (Van Hemelryk et al., 2021) ve bu da sağlıklı dokular için bileşen etkinliğinin ve sitotoksikliğinin yanlış tahmin edilmesine yol açmıştır. Bu bağlamda, gerçek tedaviye ilişkin etkileri bireysel hücre agregaları arasındaki etkileşimlerden ayırarak buna bağlı standardize bioenerjetik ve canlılık ölçümlerindeki sapmaları düzeltebilen bir in vitro etkileşim karakterizasyonuna ihtiyaç oldukça güçlüdür.
Oksijen (O₂) metabolizmasına odaklanmak, organ ve dokuların özelleşmiş işlevlerini beslediği bilinen bir süreç (Frayn, 2013) olduğundan, metabolik etkileşimin sınırlı düzeyinde kontrol edilen, birbiriyle var olan hücre tabanlı yapılardan oluşan bir popülasyon oluşturmak, biyolojideki gerçek toplulukların enerji dengesine dair içgörüler sunabilir ve böylece ekosistemlerin ölçeği küçültülmüş, izlenebilir modellerini sağlayabilir. in silico ve in vitro modeller kullanarak kolektif davranışları değerlendirmek ve bunları fenotipik yelpazeye bağlamak, biyolojik açıdan ilgili senaryolara yönelik uygulamalara yol açan yeni perspektifler açabilir. Örneğin, rastgele dağılmış, değişken boyut ve metabolik özelliklere sahip hücre agregaları içeren veya dalgalanan/bozulan çevresel koşullara maruz kalan çoklu yapı sistemleri, yaşayan sistemlerde kaynak yönetimini yönlendiren var olma mekanizmalarının değerlendirilmesi için öngörücü ve çevirilebilir bir çerçeve oluşturmak amacıyla kullanılabilir. Sonrakiler, metabolik ölçeklenme (Brown ve West, 2000; Kleiber, 1932) gibi daha yüksek düzeylerde ortaya çıkan biyolojik özelliklerin belirlenmesinde de rol oynayabilir; bu da hücre tabanlı modellerin çevrilebilirliğini değerlendirmek için bir ölçüt olarak önerilmiştir (Ahluwalia, 2017; Magliaro et al., 2019b). Dolayısıyla böyle mekanizmaların güvenilir biçimde öngörülmesi, tüm allometrik ölçeklenmenin mekanistik kökenine dair geniş tartışılan konuya dair içgörüler sunabileceği gibi, aynı insan dokusunu ya da farklı dokuları temsil eden çoklu birimler arasındaki konuşmanın, organoid teknolojisinin bir sonraki sınırı olarak öne çıkan doku mühendisliğinin yeni ucu sayılan ama yine de titiz öngörücü modellemeden yoksun, ampirik modeller olan söz konusu assembloidlar (Kanton ve Pasça, 2022; Onesto et al., 2024; Vogt, 2021) gibi fizyolojik açıdan ölçeklenebilir platformların tasarımını da yönlendirebilir.
Bu çalışma, hücre agregalarının O2 metabolizmasının ve buna eşlik eden ölçeklenme davranışlarının, aynı hücresel bileşime sahip komşu yapılarla varoluşu işlevinde değişip değişmediğini değerlendirmek üzere tasarlanmış keşif niteliğinde bir araştırmayı sunmaktadır. Daha detaylı olmak gerekirse, bir ekosistem (i.e., paylaşılan bir ortamda var olan hücre agregaları arasındaki etkileşimin, yerel besin erişilebilirliğine göre metabolik dinamikleri, bu agregaların sayısı ve uzaysal dizilimlerine bağlı olarak yönlendirdiği çoklu-yapı modeli) tasarmanın, modellenmesinin ve gerçekleştirilmesinin mümkün olup olmadığı önce in silico olarak incelenmiştir. Bu yaklaşımın metabolik etkileşimin ölçeği küçültülmüş bir modeli olarak potansiyeli, basit geometriler ve ideal koşullarda, hesaplama temelli öngörülerin beklenen sonuçlarla uyumlu olup olmadığını doğrulamak amacıyla test edilmiştir. Pratikte, varolan bireylerin (i.e., hücre içeren sferoidler) topluluk bolluğu ve uzaysal dağılımının O2 alımı ve buna ilişkili ölçeklenme özellikleri üzerindeki etkisi, sonlu eleman (FE) ve istatistiksel analizi birleştiren çoklu-sferoid sistemlerde değerlendirilmiştir. Benzer konfigürasyonlar in vitro deneylerde, daha önce yerleşik olan bir metodolojik süreç (Mancini et al., 2026) kullanılarak incelenmiştir; bu süreç, aynı petri kabında uzaysal olarak dizilmiş üç hücre içeren sferoidin O2 metabolizmasını titizlikle ölçer ve bu sferoidlerin, FE simülasyonlarında test edilenlere kavramsal olarak benzer kaynak tedariki sınırlamaları yaşamalarını sağlar. Sonuç olarak bu, sayısal sonuçların tutarlılığına dair ön kanıt işlevi görmüştür.
Ön nitelikte olması ve yalnızca yerel O2 seviyeleri üzerindeki komşuluk etkisine dayanan basitleştirilmiş bir varoluş modeli üzerine kurulu olması rağmen, bu çalışma, birden fazla hücre yapısının kaynak tüketimi açısından in vitro nasıl etkileşebileceğini anlama yönünde ilk adımı atmaktadır; farmakoloji, biyomühendislik ve ekoloji gibi çeşitli alanlarda potansiyel uygulamaları bulunmaktadır.
2 Materyaller ve yöntemler
2.1 Sonu eleman analizi
Coexistence’in O2 metabolizması ve kütleye bağlı ölçeklenme (i.e., izometrik kütü bağımlılık yerine allometrik bağımlılık) üzerindeki etkisi, COMSOL Multiphysics (versiyon 5.6, COMSOL AB, Stockholm, İsveç) içinde uygulanan FE modelleri kullanılarak değerlendirildi. Ortak bir kaynağı paylaşan in silico hücre yüklü sferoid popülasyonunun O2 taşıması ve tüketimi, metabolik ölçeklenmenin konstrüksiyonların boyutu, bolluğu ve uzaysal dağılımındaki değişimlerden nasıl etkilendiğini değerlendirmek amacıyla simüle edildi.
2.1.1 Geometrinin tanımlanması
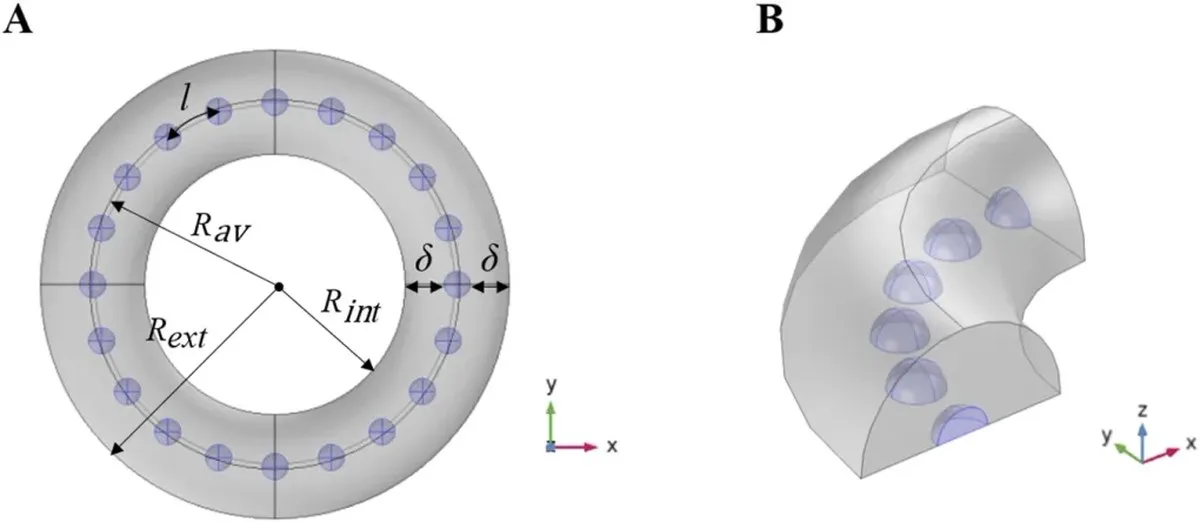
Hücresel konstrüksiyonların O2 metabolizmasının sayıları ve yoğunluklarıyla nasıl değiştiğini belirlemek için, boyutlarından bağımsız olarak hepsinin kaynak tedarikinin aynı koşullarına maruz kalması gerekir. Bu amaçla, Şekil 1’de gösterilen geometri uygulandı, çünkü bu tüm sferoidlerin aynı sınır koşuluna maruz kalmasını sağlar. Sferoidler, sulu ortamla dolu ve O2 ile doymuş bir ortamla çevrili bir toroid içinde yer alır. Konstrüksiyonlar, merkezlerinin bir düzgün çokgenin köşelerini oluşturacak şekilde yerleştirilir (Tablo 1), bu çokgen toroid’e eşmerkezli ve yarıçapı , olacak şekilde bir çember içine çizilmiştir (burada Rext ve Rint sırasıyla toroid’in dış ve iç yarıçaplarıdır) (Şekil 1A). Böylece sferoid merkezleri aynı düzlemde yer alır ve l—iki komşu kümenin merkezlerini birleştiren yayın uzunluğu anlamında—dolaylı olarak Rav üzerinden, varlığını sürdüren sferoidlerin sayısı (veya bolluğu, N) ile belirlenir. Konstrüksiyonların yarıçapları (rsph) artarken birbirlerine yaklaşmalarını önlemek ve böylece coexistence etkisini sferoid boyutundan ayırmak için Rav yine k sabiti aracılığıyla rsph ile orantılı olacak şekilde parametrelenir, nihayetinde l‘nin aşağıdaki ifadeyle verilmesini sağlar.
ŞEKIL 1
TABLO 1
| Sferoid bolluğu (N) | Düzenli çokgen |
|---|---|
| 1 | – |
| 3 | Eşkenar üçgen |
| 4 | Kare |
| 6 | Altıgen |
| 8 | Sekizgen |
| 12 | Onikigen |
| 20 | Yirmigen |
Düzenli çokgenler, toroidal ortam içinde sferoidlerin bolluklarına göre simetrik olarak konumlandırılması için referans olarak kullanılmıştır.
Eşitlik 1’de δ, rsph ile toroid kesitinin yarıçapı arasındaki farkı temsil eder. k değeriyle birlikte Rext ile Rint arasındaki ilişkiyi belirler. δ, organoid kültürlerinde kullanılan jelatin kabuklarının tipik kalınlıkları aralığında (Berger et al., 2018; Magliaro et al., 2019b; McMurtrey, 2016) olacak şekilde 3 mm olarak sabit tutulmuş ve böylece boyuttan bağımsız olarak küme sınırında homojen bir difüzyonel O2 arzı gereksinimini karşılamıştır. Sonuç olarak, sferoid çekirdekleri yarıçapları arttıkça (rsph) kaynağa giderek daha uzaklaşır ve dolayısıyla potansiyel olarak O2’den yoksunlaşır; bu durum literatürde bildirilen çalışmalarla uyumludur (Ahluwalia, 2017; Magliaro et al., 2019b). Kontrol olarak, tek bir yapının durumu da modellenmiştir; bu durumda yukarıda betimlenen kısıtlamalar, sferoidin yarıçapı belli bir kürenin merkezine yerleştirilmesiyle sağlanmıştır.
Belirli rsph, N (N = 3 değeri hariç) ve k değerlerinden bağımsız olarak, yapıların uzaysal dağılımı, toroid merkezinde birbirini kesen üç dik simetri düzlemine sahip bir geometri oluşturur. Bu nedenle, yalnızca x–y düzleminde 90°’lik açıya karşılık gelen toroidal bir sektörün üst (veya eşdeğeri olarak alt) yarısının modellenmesi yeterliydi. Üçü birden eşzamanlı olarak bulunan sferoid içeren tüm konfigürasyonlar bu geometrik özelliğe dahil değildir; burada dört simetri düzlemi geçerlidir—biri x-y düzlemine paralel, üçü buna dik ve 60°’lik açıya karşılık gelen toroidal sektörleri belirleyen. Bu özel durumda, yalnızca bu 60°’lik sektörlerden birinin yarısı modellenmiştir. rsph, N ve k üzerinde yapılan parametrik tarama, Tablo 2’de bildirilen aralıklardan belirli kombinasyonlara göre gerçekleştirilmiş; söz konusu kombinasyonlar da Kendiliğinden Ek Tablo S1’de gösterilmektedir.
TABLE 2
| Parametre | Aralık/Değer | Açıklama/Kaynak(lar) |
|---|---|---|
| [1, 3, 4, 6, 8, 12, 20] | Parametrik tarama aralığı | |
| [31; 5000] µm | Parametrik tarama aralığı (log-aralıklı) (Ahluwalia, 2017; Botte et al., 2021; Magliaro et al., 2019b) | |
| [1, 2, 4, 8, 16, 32] | Parametrik tarama aralığı | |
| 3 mm | (Berger et al., 2018; Magliaro et al., 2019b; McMurtrey, 2016) | |
| 3 × 10⁻⁹ m2 s-1 | Hem kültür ortamında hem de sferoidlerde (Berger et al., 2018) | |
| 0.2 mol m-3 | O2 doygunluğu (Mattei et al., 2014) | |
| 5 × 10¹⁴ hücre m-3 | In vivo-benzeri (Bianconi et al., 2013; Magliaro et al., 2019b) | |
| 2.75 × 10⁻¹⁷ mol hücre-1 s-1 | İnsan kaynaklı organoidler için değer (Curcio et al., 2014; Magliaro et al., 2019b) | |
| 0.201 mol m-3 | İnsan kaynaklı organoidler için değer (Curcio et al., 2014; Magliaro et al., 2019b) |
Çoklu sferoid sisteminde O₂ dinamiklerinin simülasyonunda kullanılan parametreler. Parametrik tarama için göz önüne alınan tam N, rsph ve k kombinasyonları Ek Tablo S1’de belirtilmiştir.
2.1.2 Simüle edilen biyofiziksel süreçler ve uygulama
Difüzyon-reaksiyon denklemindeki O₂ konsantrasyon alanı c (mol m⁻³), sferoid alanları içinde Michaelis-Menten (MM) kinetiğinin değiştirilmiş bir formülasyonuna göre tüketim varsayımıyla durğan durumda (Denklem 2) çözülmüştür (Ahluwalia, 2017; Magliaro et al., 2019b; Mattei et al., 2014) (ardından toroid alanında yönetici denklem bu olmuştur).
Denklem 2’de D (m² s⁻¹) 37 °C’da sudaki O₂ difüzyon katsayısı, (hücre m⁻³) her bir yapıdaki hücre yoğunluğu, (mol hücre⁻¹ s⁻¹) ve (mol m⁻³) sırasıyla tek hücrelik tüketimin maksimum hızını ve MM sabitini ifade eder. f fonksiyonu, hipoksik bölgeleri ve bunların sonucunda oluşan nekrotik merkezleri hesaba katmak üzere tasarlanmıştır; ayrıntılar Ek Malzeme’de (SM–SM1’e bakınız) verilmiştir.
Toroid’in dış yüzeyinde hem başlangıç hem de sınır koşulu olarak cb (Tablo 2) değerine eşit bir konsantrasyon atanmış; sferoid yüzeylerinde taşıma özelliklerinin ve O₂ akı alanının sürekliliği varsayılmıştır. Diğer tüm sınırlarda simetri geçerlidir. FE modelleri için ayarlanan ilgili parametreler Tablo 2’de listelenmiştir. Her geometri, önceden yapılmış bir ızgara yakınsama analizinin sonuçlarına göre önceden tanımlı ince ızgara boyutuyla ayrıklaştırılmıştır (ayrıntılar için SM2’ye bakınız).
2.1.3 İşlem sonrası analiz ve istatistiksel analiz
rsph, N ve k‘nin olası her kombinasyonu için elde edilen parametrik çözüm, her bir yapının metabolik hızı B (mol s⁻¹) tahmin etmek üzere Denklem 3’e göre işlem sonrası işlemden geçirilmiştir: burada (mol m⁻² s⁻¹) sferoid yüzeyinden geçen durğan O₂ akı alanıdır. Sferoidler ortamda simetrik olarak dağıldığından hepsi aynı B değerine sahiptir.
Ardından, tek-sferoid B‘nin boyutla ilişkili ölçeklenme üsleri, N ve k‘nin fonksiyonu olarak belirlenerek bu parametrelerin hücre agregalarının metabolik ölçeklenmesini etkileyip etkilemediğinin daha iyi değerlendirilmesi sağlandı. Ölçeklenme kuramına göre B, boyutla bir kuvvet yasası biçiminde ölçeklenir (Brown ve West, 2000; Savage ve ark., 2004); bu nedenle ölçeklenme üsü, veri kümesine logaritmik düzlemde en iyi uyum sağlayan doğrunun eğimi olarak tahmin edilir. Doğrusal uyumlandırmalar, yapı boyutu (i.e., rsph3 ya da eşdeğeri olarak kütle) ile B‘nin log-log verileri üzerinde Matlab (R2021b, The Mathworks Inc., Boston, Massachusetts, ABD) kullanılarak, çalışılan boyut aralığı boyunca Magliaro ve ark. (2019b) tarafından önerilen yaklaşıma benzer bir yöntem uygulanarak gerçekleştirildi. Ancak bu çalışmada uyumlandırma algoritması önceden tanımlanmış bir eğim (i.e., Kleiber yasasının klasik formülasyonuna göre (Kleiber, 1932) Magliaro ve ark. (2019b)’da 3/4) aramadı, bunun yerine her log-log eğrisinin en iyi kademeli regresyonunu belirledi. Ardından, elde edilen ayrıştırmanın her boyut alt-aralığının en fazla veri noktasını kapsadığı ve en yüksek R2‘yi gösterdiği durum en iyi uyum olarak belirlendi. Regresyon doğrularının karşılık gelen eğimleri sonra çıkarılarak boyutla ilişkili ölçeklenme katsayısı temsil edildi. Uyumlandırma algoritmasına ilişkin ek ayrıntılar SM’de (SM3 bölümü) verilmiştir. Son olarak, parametrik olmayan Spearman korelasyon katsayısının tahmini ve sıfırdan anlamlı biçimde farklı olup olmadığının sınanması GraphPad Prism (sürüm 7, GraphPad Prism Software, California, ABD) kullanılarak gerçekleştirildi.
2.2 Kavram kanıtı in vitro karakterizasyonu
in silico deneylerinin sağladığı özgün avantajlardan biri, sorgulanabilirlik ve parametreilendirilebilirliğidir. Zira burada FE simülasyonları aracılığıyla uygulanan çok sayıda yapılandırma laboratuvar üretilebilir ve sınanabilir durumda değildir. in silico sonuçlarının ilk geçerlilik kanıtını sağlamak amacıyla, sanal modelin öne çıkan özelliklerini yeniden özetleyen sadeleştirilmiş bir kurulumda O2 tüketiminin ölçülmesini hedefleyen deneyler tasarlandı.
2.2.1 Deneysel tasarım
Deneysel çalışmalarda korunması gereken temel özellikler önce belirlendi. Kesinlikle, O2 tedariki açısından çoklu-konstrükt sisteminin simetrisi, tek bireyi inceleme yoluyla karakterize edilebilen bir in vitro ekosistemi elde etmek için kritik önem taşır; bu da deney süresini ve teknik karmaşıklığı en aza indirir. Bu nedenle, toroidal geometrideki sferoidlerin düzlemsel dağılımı, Petri kabı içinde yeniden üretilebilecek şekilde uyarlanmış ve sferoidlerin göreli konumları mekanik olarak sınırlanmıştır. Burada, sferoid sayısı sabit tutularak inter-sferoid mesafenin korunması yerine, sferoidlerin oksijenli ortam içinde sabit bir hacimde tutulması ve aralarındaki mesafenin değiştirilmesi tercih edilmiştir. İdeal konfigürasyonların in silico incelendiği durumların aksine, kaynak kısıtlamasının kabı dolduran kültür ortamının hacmine güçlü şekilde bağlı olduğunu unutmamak gerekir. Dolayısıyla, simetri korunmuş olsa da, konstrüktlerin daha seyrek packlanmış bir dağılımının, zorunlu paylaşımdan kaynaklanan O2 açlığına yol açması muhtemeldir; bu durum, teknik olarak sferoid üretimine izin verilen maksimum hücre yoğunluğu ile bu O2 tederik kısıtlaması arasındaki denkleşmeye bağlı olarak değişir (bkz. Alt bölüm 2.2.2) – ki bu iki etki birbirini bir ölçüde dengeler. Simüle edilen eşzamanlı varoluş senaryolarına ilişkin bu kaçınılmaz farklar, yine de söz konusu kavram kanıtı deneylerinin amacını engellemez; amaç nicel doğrulamadan çok, hesaplama temelli tahminlerin tutarlılığını ön incelemektir.
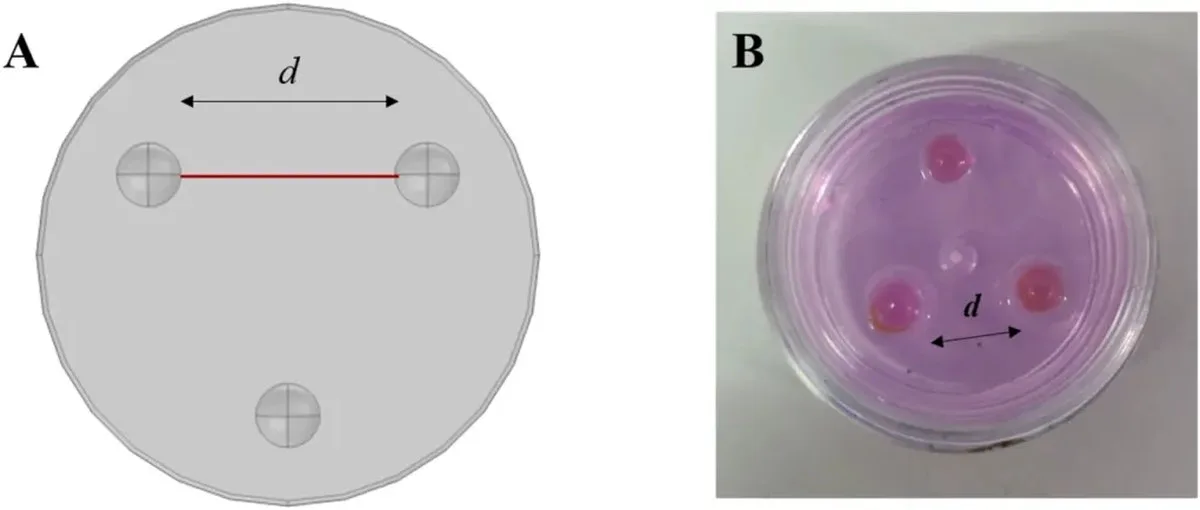
Ayrıntılı olarak, yapıların Petri kabına dağılımı; merkezleri eşkenar üçgenin köşelerinde yer alan ve aralarındaki mesafe d—bu durumda iki komşu yapının yüzeyleri arasındaki mesafe olarak tanımlanarak, sayısal olarak bu köşeleri birleştiren üçgenin kenar uzunluğundan sferoid çapının çıkarılmasıyla karşılık gelen—değştirilecek şekilde, hücre içeren üç sferoid içerecek biçimde tasarlandı (Şekil 2A). Birlikteliğin O2 metabolizması üzerindeki etkisini değerlendirmek için sferoidlerin, kaynak tedarikinde kısıtlamaya yol açan ve dolayısıyla metabolik modülasyona neden olan maksimum mesafanın hem altında hem de üstünde olacak şekilde yerleştirildiği durumlarda incelenmesi gerekir. Bu amaçla, deneysel olarak test edilecek uygun d aralığını belirlemek amacıyla bu eşik mesafe d ön çalışma kapsamında değerlendirildi. d‘nin, iki komşu yapının yüzeylerini birleştiren ve gerçekten uzunluğu d olan doğru boyunca O2 konsantrasyon alanının ortalamasının maksimumunun %10’unun altına düşeceği d değeri olarak tanımlandı ve SM’de ayrıntılı olarak betimlendi (SM4’e bakınız). d değerleri buna göre tasarlandı (Tablo 3).
ŞEKİL 2
TABLO 3
| d (mm) | Tekrarlar | Notlar |
|---|---|---|
| 0 | 6 | Bir tek, daha büyük niş içinde, yüzeyleri birbirine değen sferoidler |
| 2 | 15 | d < d |
| 14 | 10 | d > d |
| d → | 6 | Kabın tabanın merkezinde konumlandırılmış tek, izole sferoid |
O2 metabolizması üzerindeki birliktelik etkisini in vitro test etmek için uygulanan sferidler arası mesafalar ve gerçekleştirilen karşılık gelen deneysel tekrar sayısı; tekrarların farklı kablarda bağımsız olarak gerçekleştirilen ölçüm sayısı olarak anlaşılmalıdır.
2.2.2 Hücre içeren sferoidlerin imalatı ve yerleştirilmesi
Hücre içeren sferoidler, neredeyse ideal bir yapı küreselliği sağlayan, ekstrüzyon tabanlı ve bilgisayarla kontrollü bir biyofabrikasyon platformu (SpHyGa) aracılığıyla elde edildi (Tirella et al., 2014). HepG2 hücreleri (ATCC, Manassas, Virginia, USA), hücre içeren hidrogel yapılarında yaygın olan 2,5 × 10⁶ hücre cm⁻³ yoğunluğunda, Dulbecco’nun Değiştirilmiş Eagle Ortağı (DMEM–Sigma-Aldrich, St Louis, Missouri, USA) içinde %1 w/v aljinik asit (Sigma-Aldrich) ve %0,004 tip I kolajen (Life Technologies Corporation, New York, USA) ile süspanze edildi. Hücre süspanzyonundan damlalar, 1,6 mm çapında bir uç ve 8 μL s⁻¹ akış hızı kullanılarak 0,1 M kalsiyum klorür (CaCl₂) banyosuna ekstrüze edildi. Elde edilen sferoidler taze ortama aktarıldı ve test öncesi gece boyu inkübe edildi (37 °C, %95 bağıl nem, %5 CO₂). Tüm süreç, laminar akış kabı altında steril koşullarda yürütüldü. Geçiş numarasının hücre boyutu ve dolayısıyla metabolizma üzerindeki son dönemde bildirilen etkisi göz önüne alındığında, bu çalışmada incelenen hücre yapılarının mümkün olduğunca dar bir geçiş penceresinden üretilmiş olması önemle vurgulanmalıdır – ardışık sekiz adet ayrılma-ekim döngüsü ve hücrelerin 11’den 18’e geçiş yaşamış olması.
Hücre içeren sferoidlerin ölçümler sırasında konumlarını sınırlamak için, tabağın dibine dökülen agaroz hidrogelin yüzeyine, yapılarla uyumlu şekilde uygun boyutta yarı küresel nişler oluşturuldu (Ek Figure S3). Agaroz, yapısal kararlılığı ve O₂ geçirgenliğinin hem sulu ortamlar hem de sferoidlerin aljiniz matrisiyle karşılaştırılabilir kabul edilebilmesi nedeniyle seçildi; bu sayede O₂ tedarikinde ek sınırlamalar getirilmedi (Guaccio et al., 2008). Hidrogel altlığının tasarımı ve yapımı ile deney tasarımının uygun şekilde uygulanması hakkındaki tüm ayrıntılar için SM (SM7 bölümü) bölümüne başvurun. Teste hazır in vitro ekosistemin örnek bir görüntüsü Figure 2B’de gösterilmiştir.
2.2.3 O₂ algılama, metabolik hız tahmini ve istatistiksel analiz
Her bir sferitler arası mesafe için, O₂ konsantrasyon ölçümleri laboratuvarımızda daha önce yerleşik hale getirilen model yönlendirmeli bir iş akışı doğrultusunda gerçekleştirildi (Mancini et al., 2026). Kısa özetle, çıplak bir optik lif mikrosensör (OXR50, Pyroscience GmbH, Aachen, Almanya) kullanılarak, durağan koşullar elde edilene kadar (yani, tespit edilen O₂ konsantrasyonundaki sapma, en az 5 dakika boyunca doygunluk değerinin %1’i içinde kaldığında—(Mancini et al., 2026) bakınız) konstrüksiyonun merkezindeki () ve yüzeyindeki () O₂ seviyesi yerel olarak izlendi; böylece yerel küresel simetri varsayımı altında durağan durum radyal konsantrasyon gradyanının tahmini yapıldı. Her bir test edilen sferit için bireysel metabolik hız B, 4. denklem uygulanarak belirlendi: burada R, deney öncesinde görüntüleme ile ölçülen eşdeğer sferit yarıçapıdır (yani, konstrüksiyonla aynı hacme sahip bir kürenin yarıçapı). 4. denklem, 3. denklemin resmi tanımının operasyonel bir yaklaşımıdır ve (Mancini et al., 2026) ile SM (SM5 bölümü) içinde detaylandırıldığı gibi doğrudan bundan türetilebilir. Bu yaklaşım doğası gereği bir hata içerir; ancak çalışmanın deney sonuçlarının güvenilirliğini bozmadığı uygun şekilde doğrulanmıştır. Daha fazla ayrıntı için SM5 bölümüne bakınız. Bahsedildiği gibi, konstrüksiyonların simetrik uzaysal dağılımından yararlanarak, Petri kabındaki üç sferitten yalnızca birinin için B tahmini, sistemin tamamının O₂ metabolizmasını karakterize etmek için yeterliydi.
B‘nin hesaplanması için veri işleme Matlab (sürüm 2021b) içinde gerçekleştirilirken, B‘deki olası istatistiksel farklar ve d‘ye göre korelasyonu GraphPad Prism (sürüm 7) içinde değerlendirildi.
3 Bulgular
3.1 Sonlu eleman analizi
In silico öngörüler, tek konstrüksiyonların B değerlerinin ve ilgili ölçekleme üslerinin rsph, N ve k‘nin çok değişkenli fonksiyonları olarak görselleştirilmesi amacıyla enterpolasyonlu yüzey grafikleri olarak özetlenmiştir.
3.1.1 Birlikte varlığın sferit metabolizmasında düzenleme uyandırdığı öngörülmüştür
Şekil 3A, değerlendirilen en düşük sferoid bolluğu (N = 3) için bireysel B değerlerinin rsph ve k‘ye göre gösterimini sunar. B, rsph‘den bağımsız olarak sferoidler arası mesafe (yani k değeri) ile yaklaşık olarak sabit kalmaktadır. Topluluğun bolluğu N = 20’ye kadar artırıldığında, yapı boyutu arttıkça B k‘ye bağlı hale gelir; 466.12 µm için gerçekten bu iki arasında pozitif bir korelasyon gözlemlenmektedir (Spearman katsayısı r = 1, p = 0.0028 ile 0’dan anlamlı şekilde farklı), ki bu açıkça Şekil 3B’nin sol üst köşesinde görülmektedir. Bu bölgede sferoidler büyüktür (yüksek rsph) ve sıkı paketlidir (çünkü k küçüktür ve N maksimumuna eşittir). Bu nedenle kaynakları paylaşmaya zorlanırlar ve bireysel B belirgin şekilde azalır. Genel olarak bu, beklenen bir davranıştır. Aslında, toroidal konfigürasyonun düşük O2 konsantrasyonuna sahip difüzyonla sınırlı bölgelerin oluşumunu engellediği göz önüne alındığında, sistemdeki her sferoid yüksek k değerleri için doyum yakını koşullara maruz kalır. Ardından, k azaldıkça ve yapılar birbirine yaklaştıkça, azalan yerel O2 seviyeleri nedeniyle kaynak alımlarını düzenlemeye zorlanırlar.
ŞEKİL 3
3.1.2 Birlikteliğin, boyutla ilişkili sferoid metabolizma ölçe sapması öngörülmektedir
Mahsup edilen metabolik hızların, hücre konstrüksiyonlarının bir arada varlığının boyutla ilgili ölçeklenmeye dair sonuçları da olabileceğini göstermesi nedeniyle, N ve k değerlerinin her kombinasyonu için B‘nin rsph3 ile ilişkisindeki üs yasası davranışı, önceki bölümde betimlenen kademeli regresyon yöntemiyle analiz edildi (ayrıca SM–bölüm SM3’e bakınız). Tüm durumlarda üç boyut alt aralığı belirlendi: i) izometrik ölçeklenme davranışıyla karakterize edilen küçük yarıçaplar; ii) ölçeklenme üssünün birden önemli ölçüde farklılaşmaya başladığı, yani izometrik olmayan ya da allometrik ölçeklenme gösterilen orta boyutlar; iii) sistemin tasarımına bağlı olarak difüzyon sınırlamalarıyla belirlenen geometri kaynaklı metabolik ölçeklenme gösterilen büyük yarıçaplar. Izometrikten izometrik olandan geçiş yarıçapları, N ve k‘nin fonksiyonu olarak Şekil 3C’de verilmiştir. N‘den bağımsız olarak, geçiş boyutu ile k arasındaki pozitif korelasyon (Spearman katsayısı r = 0,8452, 0’dan önemli ölçüde farklı, p = 0,0467), spheroidlerin birbirine ne kadar yakınsa, izometrik olmayan ölçeklenmeyi tetikleyen yarıçapının o kadar küçük olduğunu göstermektedir (Şekil 3C). Bu sonuç, seçilen konfigürasyon için makuldür; çünkü kaynak paylaşımından kaynaklı yerel O2 kullanılabilirliğinin sınırlı olması nedeniyle, yoğun paketlenmiş konstrüksiyonlarda tüketim hızlarını düzenleyen O2 konsantrasyon gradyanları daha küçük yarıçaplarda ortaya çıkar. Regresyon katsayıları kısıtlanmamış olsa da, izometrik olmayan boyut alt aralığındaki spheroidlerin ölçeklenme üssünün, tipik 3/4 değeri etrafında toplandığı ve düşük mesafede çok sayıda konstrüksiyonun bir arada varlığında tutarlı bir azalma gösterdiği görülmüştür (Şekil 3D). Aslında, 8 için, üssün değeri ile N arasındaki korelasyon analizi, 0’dan önemli ölçüde farklı bir Spearman katsayısı −0,9429 ( 0,0167) vermektedir. Izometrik ve geometrik boyut alt aranlıklarının ölçeklenme üssleri Ek Şekil S5’te verilmiştir.
3.2 Kanıt-kavram deneysel sonuçları sayısal tahminlerle tutarlı olduğunu kanıtlıyor
Şekil 3E, Tablo 3’de bildirilen, farklı yapılar arası mesafelerde in vitro ortamlarda birlikte yaşayan hücre yüklü sferoidlerden tahmin edilen bireysel metabolik hızları özetlemektedir. Parametrik olmayan Kruskal–Wallis testi, B medyan değerleri arasında istatistiksel açıdan anlamlı farkları ortaya koymuştur (p < 0,0001). Özellikle, post hoc Dunn çoklu karşılaştırmaları ile belirtildiği gibi, izole yapı için, birbirine yakın yaşayan sferoidlere kıyasla, yani, d = 2 mm için anlamlı derecede yüksek bir O2 metabolizması tespit edilmiştir. Metabolik crosstalk için önerilen tanımla ve mesafe eşiğinin tahmin edilen değerleriyle tutarlı olarak, d = 14 mm durumunda ise istatistiksel farklar savunulamamaktadır. Genel olarak, korelasyon analizi ile istatistiksel olarak doğrulanmasa da (Spearman katsayısı r = 1 ancak p = 0,0833 ile 0’dan anlamlı derecede farklı değil), d arttıkça medyan B değerinde artış eğilimi gözlemlenebilir; bu, in silico modellerin sonuçlarıyla tutarlı olarak, birlikte yaşamanın hücre yapılarının O2 tüketimini in vitro ortamlarda etkileyebileceğine dair ilk deneysel kanıttır. Bu durum, çoklu yapı sisteminin uzamsal yerleşimine bağlı olarak hücrelere yerel olarak ulaşılabilir O2’nin azalmasına yol açan zorunlu kaynak paylaşımından kaynaklanabilir (yani, yoğun paketlenmiş yapı dağılımlarında bireysel B değerinde daha büyük bir azalma ile).
4 Tartışma
Bu çalışmada, birlikte yaşamanın O2 metabolizması ve buna eşlik eden hücre yapılarının boyuta bağlı ölçeklendirmesi üzerindeki etkisine dair ön araştırma sunulmaktadır. Amaç çifttir: i) çalışma altındaki tedavinin gerçek etkisini, standart in vitro toksikolojik deneylerde yaygın bir sorun olan komşu yapılar arasındaki metabolik etkileşimlerden kaynaklanan fenotipik değişimlerden ayırtacak bir kavratlama (proof-of-concept) araç setini geliştirmek; ii) hücre modellerinin, metabolik etkileşim açısından ölçekten bağımsız popülasyon davranışlarını öngörmekte kullanılabilecek, ekosistemlerin ölçeği küçültülmüş replikaları olarak potansiyelini araştırmak.
Tek yapıların metabolik hızları (B), her popülasyon için aynı enerji-kaynak sınırı korunarak farklı düzenlemelerde hücre yüklemeli sferoidler için sayısal olarak tahmin edilmiştir. in silico modeller, büyük yapılar (466.12 µm) için bireysel B değerinin topluluk yoğunluğu yüksek ve sferoidler arası mesafe küçük olduğunda azaldığını göstermektedir (Şekil 3B). Bu, beklenen davranışla uyumludur: bir araya gelip kaynak paylaşmaya zorlandığında hücre yapıları, azalan O2 kullanılabilirliğine yanıt olarak oksijen kullanımını düzenleme eğiliminde olur. Ayrıca, geniş aralıklı sferoidler (i.e., k = 32) için izometrik olmayan boyut aralığı (Şekil 3C) ve buna bağlı ölçekleme üsleri (Şekil 3D), Magliaro ve ark. (2019b) tarafından δ ile karşılaştırılabilir kalınlıkta bir hidrogel kabuğu içinde gömülü tek sferoidler için bildirilenlere benzerdir; oysa bu çalışmada üs değerleri önceden a priori varsayılmamıştır. Ancak k azaldığında, izometrikten izometrik olandan geçiş daha küçük boyut aralıklarında gerçekleşir (Şekil 3C). Bunun nedeni sferoidlerin birbirine yaklaşması ve giderek daha sınırlı enerji kaynaklarından beslenmesidir. Ortak ortamı paylaşmak, şaşırtıcı olmayan biçimde, yoğun paketlenmiş çok sayıda yapının bulunduğu izometrik olmayan boyut aralığında ölçekleme üs değerlerinin düşmesine de yol açar (Şekil 3D).
Ardından, simüle edilen çoklu sferoid sistemler in vitro ortamda çoğaltılabilecek şekilde uyarlandı ve metabolik etkileşimin bir arada yaşama sonucu ortaya çıkıp çıkmadığını değerlendirmek için üç-sferoid sistemler üzerinde ilk keşif amaçlı deney seti gerçekleştirildi; bu sayede sayısal sonuçların tutarlılığı niteliksel olarak kanıtlandı. Simüle edilen ve deneysel senaryolar arasındaki farklar görmezden gelinemez olsa da, hücre yüklemeli sferoidler için in vitro ortamda belirlenen metabolik hızlar, hesaplama modellerinin öngördüğü ile uyumlu bir davranış göstermektedir. Aslında, B‘nin sferoidler arası mesafeyle ilgili pozitif bir eğilimi (Şekil 3E) ortaya koyulmuştur. Bu durum hesaplama öngörülerinin sistematik bir doğrulaması olarak kabul edilemez olsa da, bir arada yaşayan ve kaynak paylaşmaya zorlanan hücre yapılarının, azalan yerel erişilebilirliğe talep uyarlarken O₂ kullanımını azalttığına dair ilk deneysel kanıtı sunmaktadır.
Sayısal ve deneysel sonuçlar arasındaki tutarlılık, bilgisayar tabanlı modellerin in vitro ortamda varoluşu çalışmada sahip olduğu potansiyeli vurgulamaktadır. Gözlemlenen dinamikler, hücre paketlemesi düzeyinin bir fonksiyonu olarak bireysel metabolizmalarını düzenledikleri ve kinetik sabitler açısından da önemli değişiklikler gösterdikleri bildirilen insan kaynaklı hepatositlerde boyutluluklar boyunca ortaya çıkan dinamiklerle gerçekten karşılaştırılabilirdir (Botte et al., 2024; ; Magliaro et al., 2019a). Dolayısıyla, belirli ve basit konfigürasyonlara dayanmaları ve sabit tüketim kinetiği varsayımında bulunmaları rağmen, bu sonuçlar metabolik düzenlemeyi, birden fazla biyolojik “birim” – ister hücre, ister basit hücre agregası isterse birbirine bağlı organ modelleri olsun – temel bir kaynağın sınırlı miktarını paylaştığı her biyolojik sistemin ölçekler boyunca ortaya çıkan içsel bir özelliği olarak öne çıkarmaktadır.
ör.
aynı ortam içindeki O₂ konsantrasyonunu etkiler. Zaten bu keşif aşamasında bu durum, tipik deney ortamlarında gerçekleştirilen ilaç tasarımı ve toksikolojik değerlendirmeler için kaçınılmaz sonuçlar doğurur; bu ortamlarda hücre agregaları ortak bir kültür ortamı hacmi içinde veya aynı yapısal matris içinde beslenir ve tedavi edilir (Van Hemelryk ve ark., 2021). Metabolik krosstalk’ün gözlemlenen farmakolojik veya toksikolojik etkiye özgü katkısını güvenilir biçimde öngören entegre bir çerçevenin sunulması, gerçekten de doz-yanıt eğrilerinin doğruluğunu büyük ölçüde artıracak; nihayetinde hastaya özgü tedavilerin tasarımını iyileştirecek ve ilaç keşfi ile ticarileştirmenin hızlanmasına potansiyel olarak katkı sağlayacaktır. Örnek olarak, kemoterapötiklerin geliştirilmesi hâlâ yaklaşık %95’lik bir elenme oranıyla yükleştir (Sun ve ark., 2022); erken evre bileşiklerin klinik başarısızlıklarının %40–50’si, önyargılı taramaları da içeren uygunsuz preklinik deneylere bağlanır.
in vitro
(Mullard ve ark., 2023; Wong ve ark., 2019). Burada önerilen kavratlama kanıtı, böyle bir deney tasarımını destekleyerek bu sorunu çözmeye yardımcı olabilir; metabolik etkileşimleri minimize eden uzaysal konfigürasyonları belirleyerek hücre yapıları arasındaki metabolik etkileşimleri azaltırken karşılaştırılabilir bir tarama verimliliğini korur ve toplanan çıktıların ortak yaşam koşullarını dikkate alan biçimde işlenmesini sağlar—laboratuvarlar arası karşılaştırmaları teşvik etmek ve aday bileşiklerin erken evrede daha güvenilir biçimde seçilmesini güvence altına almak açısından kritik öneme sahip.
Bu arada, daha karmaşık ve biyolojik açıdan daha anlamlı çoklu sferoid sistemler üzerinde daha ileri analizlerin yapılması gerekmektedir. Özellikle, grupumuzun (Botte et al., 2021) tartıştığı gibi yapı boyutu hem de mekânsal dağılım açısından rastlantısallık getirilebilir; ayrıca hücre döngüsünün farklı evrelerinde bulunan hücrelerle yüklenmiş var olan yapılar (örneğin, durgun ya da metabolik açıdan aktif), farklı hücre fenotipleri (örneğin, bir biyolojik doku veya organın bileşimiyle ilgili) ya da farklı türlerden elde edilen hücreler (örneğin, doğadaki belirli bir ekosistemin bileşimiyle ilgili) dikkate alınabilir. Bu nedenle amaç, ölçeğinden bağımsız olarak gerçek biyolojik topluluklarda gözlemlenebilen temel grup davranışlarını yeniden üretebilen yapılandırmaları belirlemektedir. Metabolik etkileşimin mekânsal boyutunu dahil ederek yaklaşımımız, doğası gereği popülasyon dinamiğine ilişkin tipik Lotka-Volterra benzeri modellerin (Raffoul, 2018) sınırlamalarını aşma potansiyeline sahiptir; bu modellerde tür bolluğunun zamana bağlı gelişimi yalnızca boyutsuz bir çerçevede etkileşim olasılıkları veya kaynak tükenmesi gibi özet parametrelerle yönlendirilir (Ching ve Baigent, 2019; Medvinsky et al., 2020) ve kütle taşınmasıyla ilgili olanlar gibi biyotik olmayan, mekânsal çözünürlüğe sahip kısıtlamalardan yoksundur.
Sonuç olarak bu çalışma, varlığını birlikte sürdüren hücre yapılarını doğal ekosistemlerin ölçeği küçültülmüş bir öngörü modeli olarak kullanmanın ve etkileşim kaynaklı hataları standart doz-tepki değerlendirmelerinde nicelendirmenin ilk girişimidir. Etkiler, biyomedikal alanda çoklu doku veya çoklu organ sistemlerinden, makro ölçekte heterojen topluluklara kadar uzanır; bunlar, deniz ortamlarında mikrobiyal karbon sabitleme ya da kaynakların yönlendirdiği bitki türlerinin coğrafi dağılımı gibi birbirinden çok farklı çevresel süreçlerin öngörülmesinde ekolojik açıdan önem taşıyabilir (Baer ve Maron, 2018; Mattern ve ark., 2022). Uygun biçimde tasarlanmış deney hücre modelleriyle birleştirildiğinde, burada tartışılan in silico araçları, bileşik taramalarının in vitro-insana çıkarımına ilişkin çıkarımlar ve popülasyonların çevresel değişimlere nasıl uyum sağladığı konusunda özel bir odakla, geniş bir varlığını birlikte sürdüren yapı konfigürasyonlarını incelemek için maliyet etkin, kullanımı kolay ve sürdürülebilir bir platform oluşturabilir.
Açıklamalar
Veri erişilebilirliği açıklaması
Bu çalışmada sunulan veri setleri çevrimiçi arşivlerde bulunabilir. Arşivin/arşivlerin adı ve erişim numarası aşağıda verilmiştir: https://doi.org/10.5281/zenodo.22031251.
Ahlak açıklaması
Sadece ticari olarak mevcut, yerleşik hücre hatları kullanıldığı için yerel mevzuat ve kurumsal gerekliliklere uygun olarak insanlar üzerindeki çalışmalar için etik onayı gerekli değildi.
Yazar katkıları
PM: Veri düzenlemesi, Biçimsel Analiz, Araştırma, Yöntem, Yazılım, Doğrulama, İnceleme ve düzenleme. CM: Kavramsal çerçeve, Yöntem, Yönetim, İnceleme ve düzenleme. EB: Kavramsal çerçeve, Veri düzenlemesi, Biçimsel Analiz, Finansman edinme, Araştırma, Yöntem, Görselleştirme, Özgün taslak, İnceleme ve düzenleme.
Finansman
Makale(y) yazarları, bu çalışma ve/veya yayını için finansal destek alındığını beyan etti. Bu sonuçlara yol açan çalışma, İtalya Üniversite ve Araştırma Bakanlığı’nın Fondo Italiano per la Scienza çerçevesinde yürüttüğü FIS-2024 DYNAMITE projesi (CUP: I53C25002130001) kapsamında finanse edilmiştir.
Tesekkürler
Yazarlar, hücre kültürü konusundaki teknik desteği için Francesca Montemurro’ya teşekkür eder.
Çıkar çatışması
Yazarlar, bu çalışmanın ticari veya olası bir çıkar çatışması olarak değerlendirilebilecek herhangi bir ticari ya da finansal ilişki içermeksizin yürütüldüğünü beyan etti.
Üretken yapay zeka bildirimi
Yazarlar, bu metnin hazırlanmasında üretken yapay zeka kullanılmadığını beyan etti.
Bu makaledeki figürlerle birlikte sağlanan alternatif metinler (alt text) Frontiers tarafından yapay zeka desteğiyle oluşturulmuş olup, mümkün olduğunca yazarların gözden geçirmesini de içeren makul çabalarla doğruluğunun sağlanması için gerekli özen gösterilmiştir. Herhangi bir sorun tespit etmeniz halinde lütfen bizimle iletişime geçin.
Yayıncı notu
Bu makalede ifade edilen tüm iddialar yalnızca yazarların görüşlerini yansıtır ve bağlı oldukları kuruluşların, yayıncının, editörlerin veya hakemlerin görüşlerini mutlaka yansıtmaz. Bu makalede değerlendirilebilecek herhangi bir ürün veya üreticisinin yapabileceği herhangi bir iddia, yayıncı tarafından garanti edilmez veya desteklenmez.
Ekleme materiali
Bu makalenin Ekleme Materiali çevrimiçi olarak şu adresten bulunabilir: https://www.frontiersin.org/articles/10.3389/fbioe.2026.1975503/full#supplementary-material
-
Ahluwalia A. (2017). Allometric scaling in-vitro. Sci. Rep.7, 1–7. 10.1038/srep42113
- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Armstrong R. A. McGehee R. (1976). Paylaşılan kaynaklar için rekabet eden türlerin eşzamanlı varlığı. Theor. Popul. Biol.9, 317–328. 10.1016/0040-5809(76)90051-4
- Pubmed Özeti
- CrossRef
- Google Scholar
- Makalede kaynağı görüntüle
-
Baer K. C. Maron J. L. (2018). Tohum olgunlaşmadan önce tohum yeme ve polen sınırlaması, Astragalus utahensis’in coğrafi dağılımı boyunca nüfus büyümesini sınırlar. J. Ecol.106, 1646–1659. 10.1111/1365-2745.12932
- CrossRef
- Google Scholar
- Makalede kaynağı görüntüle
-
Banavar J. R. Damuth J. Maritan A. Rinaldo A. (2002). Arz-talep dengesi ve metabolik ölçeklenme. Proc. Natl. Acad. Sci.99, 10506–10509. 10.1073/PNAS.162216899
- Pubmed Özeti
- CrossRef
- Google Scholar
- Makalede kaynağı görüntüle
-
Banavar J. R. Moses M. E. Brown J. H. Damuth J. Rinaldo A. Sibly R. M. ve ark. (2010). Hayvanlarda dörtte bir güç ölçeklenmesi için genel bir temel. Proc. Natl. Acad. Sci. U. S. A.107, 15816–15820. 10.1073/pnas.1009974107
- Pubmed Özeti
- CrossRef
- Google Scholar
- Makalede kaynağı görüntüle
-
Berger E. Magliaro C. Paczia N. Monzel A. S. Antony P. Linster C. L. ve ark. (2018). Milifluidik kültür, insan orta beyin organoidlerinin canlılığını ve farklılaşmasını iyileştirir. Lab. Chip18, 3172–3183. 10.1039/c8lc00206a
- Pubmed Özeti
- CrossRef
- Google Scholar
- Makalede kaynağı görüntüle
-
Bianconi E. Piovesan A. Facchin F. Beraudi A. Casadei R. Frabetti F. ve ark. (2013). İnsan vücudundaki hücre sayısının bir tahmini. Ann. Hum. Biol.40, 463–471. 10.3109/03014460.2013.807878
- Pubmed Özeti
- CrossRef
- Google Scholar
- Makalede kaynağı görüntüle
-
Botte E, Biagini F, Magliaro C, Rinaldo A, Maritan A, Ahluwalia A. (2021). Scaling of joint mass and metabolism fluctuations in in silico cell-laden spheroids. Proc. Natl. Acad. Sci.118, e2025211118. 10.1073/PNAS.2025211118
- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Botte E, Mancini P, Magliaro C, Ahluwalia A. (2023). A sense of proximity: cell packing modulates oxygen consumption. Apl. Bioeng.7, 036111. 10.1063/5.0160422
- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Botte E, Cui Y, Magliaro C, Tenje M, Koren K, Rinaldo A. et al (2024). Size-related variability of oxygen consumption rates in individual human hepatic cells. Lab. Chip24, 4128–4137. 10.1039/d4lc00204k
- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Botte E, Mancini P, Magliaro C, Ahluwalia A. (2026). Passage‐Dependent size distributions of human‐derived cells: implications for metabolic assays. FASEB J.40, e71993. 10.1096/FJ.202600816RR
- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Brown J. H, West G. B. (2000). “25, 1942- Sept,” in Scaling in Biology. Oxford University Press.
- Google Scholar
- View reference in article
-
Brown J. H, Gillooly J. F, Allen A. P, Savage V. M, West G. B. (2004). Toward a metabolic theory of ecology. Ecology85, 1771–1789. 10.1890/03-9000
- CrossRef
- Google Scholar
- View reference in article
-
Ching A, Baigent S. (2019). The balance simplex in non-competitive 2-species scaled Lotka–Volterra systems. J. Biol. Dyn.13, 128–147. 10.1080/17513758.2019.1574033
- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Choo N. Ramm S. Luu J. Winter J. M. Selth L. A. Dwyer A. R. ve diğerleri (2021). 3B prostat kanseri organoidlerinin ilaç taraması için yüksek verimli görüntüleme testi. SLAS Discov.26, 1107–1124. 10.1177/24725552211020668
- Pubmed Özeti
- CrossRef
- Google Scholar
- Makalede kaynağı görüntüle
-
Curcio E. Piscioneri A. Morelli S. Salerno S. Macchiarini P. De Bartolo L. (2014). Doku mühendisliği yoluyla üretilmesi öngörülen bir trakeada hücrelerce oksijen alınmasının kinetiği. Biomaterials35, 6829–6837. 10.1016/j.biomaterials.2014.04.100
- Pubmed Özeti
- CrossRef
- Google Scholar
- Makalede kaynağı görüntüle
-
Driehuis E. Kretzschmar K. Clevers H. (2020). İlaç taraması uygulamaları için hastadan elde edilen kanser organoidlerinin kurulması. Nat. Protoc.15, 3380–3409. 10.1038/S41596-020-0379-4
- Pubmed Özeti
- CrossRef
- Google Scholar
- Makalede kaynağı görüntüle
-
Frayn K. N. (2013). Metabolik Düzenleme: Bir İnsan Perspektifi. 3. bş. John Wiley and Sons, Ltd.
- Google Scholar
- Makalede kaynağı görüntüle
-
Gause G. F. (1934). Var Olmak İçin Mücadele. Baltimore, Maryland, ABD: Williams & Wilkins.
- Google Scholar
- Makalede kaynağı görüntüle
-
Guaccio A. Borselli C. Oliviero O. Netti P. A. (2008). Agaroz ve kolajen jellerinde kondrositlerin oksijen tüketimi: karşılaştırmalı bir analiz. Biomaterials29, 1484–1493. 10.1016/J.BIOMATERIALS.2007.12.020
- Pubmed Özeti
- CrossRef
- Google Scholar
- Makalede kaynağı görüntüle
-
Kanton S. Pasça S. P. (2022). İnsan assembloidları. Dev149 (20), dev201120. 10.1242/DEV.201120/279754
- Pubmed Özeti
- CrossRef
- Google Scholar
-
Kleiber M. (1932). Body size and metabolism. Hilgardia 6, 315–353. 10.3733/hilg.v06n11p315
- CrossRef
- Google Scholar
- View reference in article
-
Kopper O., de Witte C. J., Lõhmussaar K., Valle-Inclan J. E., Hami N., Kester L. et al (2019). An organoid platform for ovarian cancer captures intra- and interpatient heterogeneity. Nat. Med. 255, 838–849. 10.1038/s41591-019-0422-6
- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Lankau R. A. (2011). Rapid evolutionary change and the coexistence of species. Annu. Rev. Ecol. Evol. Syst. 42, 335–354. 10.1146/annurev-ecolsys-102710-145100
- CrossRef
- Google Scholar
- View reference in article
-
Lotka A. J. (1925). Elements of Physical Biology. Baltimore, Maryland, USA: Williams & Wilkins.
- Google Scholar
- View reference in article
-
Magliaro C., Mattei G., Iacoangeli F., Corti A., Piemonte V., Ahluwalia A. (2019a). Oxygen consumption characteristics in 3D constructs depend on cell density. Front. Bioeng. Biotechnol. 7, 251. 10.3389/fbioe.2019.00251
- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Magliaro C., Rinaldo A., Ahluwalia A. (2019b). Allometric Scaling of physiologically-relevant organoids. Sci. Rep. 9, 1–8. 10.1038/s41598-019-48347-2
- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Mancini P., Botte E., Magliaro C., Ahluwalia A. (2026). A model-driven pipeline for measuring oxygen consumption rates in cell-laden microspheres. Biophys. Rev. 7 (2), 021402. 10.1063/5.0281804
- CrossRef
- Google Scholar
- View reference in article
-
Mattei, G., Giusti, S., Ahluwalia, A. (2014). Biyoreaktörlerde fizyolojik açıdan anlamlı in vitro modellerin oluşturulması için tasarım kriterleri. Processes2, 548–569. 10.3390/pr2030548
- CrossRef
- Google Scholar
- Referansı makalede görüntüle
-
Mattern, J. P., Glauninger, K., Britten, G. L., Casey, J. R., Hyun, S., Wu, Z., et al (2022). Boyut dağılımı zaman serilerinden fitoplankton popülasyon dinamiklerini modellemek için Bayesian yaklaşımı. PLOS Comput. Biol.18, e1009733. 10.1371/JOURNAL.PCBI.1009733
- Pubmed Abstract
- CrossRef
- Google Scholar
- Referansı makalede görüntüle
-
McMurtrey, R. J. (2016). Üç boyutlu doku yapılarında oksijen ve besin difüzyonu, metabolik dinamikler ve mimari optimizasyonu için analitik modeller: serebral organoidlerde uygulamalar ve içgörüler. Tissue Eng. Part C. Methods22, 221–249. 10.1089/TEN.TEC.2015.0375
- Pubmed Abstract
- CrossRef
- Google Scholar
- Referansı makalede görüntüle
-
Medvinsky, A. B., Adamovich, B. V., Rusakov, A. V., Tikhonov, D. A., Nurieva, N. I., Tereshko, V. M. (2020). Popülasyon dinamikleri: matematiksel modelleme ve gerçeklik. Biophys.646 (64), 956–977. 10.1134/S0006350919060150
- CrossRef
- Google Scholar
- Referansı makalede görüntüle
-
Molecular Devices (2026). Organoidi Di Carcinoma Del colon-retto. San Jose, CA: CRC. Çevrimiçi olarak kullanılabilir: https://it.moleculardevices.com/applications/3d-cell-models/organoids/colorectal-cancer-crc-organoids (Erişim tarihi: 8 Nisan 2026).
- Google Scholar
- Refermans makalede görüntüle
-
Moshksayan, K., Kashaninejad, N., Warkiani, M. E., Lock, J. G., Moghadas, H., Firoozabadi, B., et al (2018). Spheroids-on-a-chip: sferoid oluşumu ve kültürü için mikrofluidik platformlarda son gelişmeler ve tasarım göz önünde bulundurmaları. Sensors Actuators B Chem.263, 151–176. 10.1016/J.SNB.2018.01.223
- CrossRef
- Google Scholar
- Referansı makalede görüntüle
-
Mullard A. (2023). R&D re-balancing act. Nat. Rev. Drug Discov.22, 258. 10.1038/D41573-023-00042-8
- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Onesto M. M. Kim J. il Pasca S. P. (2024). Assembloid models of cell-cell interaction to study tissue and disease biology. Cell Stem Cell31, 1563–1573. 10.1016/j.stem.2024.09.017
- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Raffoul Y. N. (2018). Population dynamics. Qual. Theory Volterra Differ. Equations, 229–252. 10.1007/978-3-319-97190-2_5
- CrossRef
- Google Scholar
- View reference in article
-
Savage V. M. Gillooly J. F. Woodruff W. H. West G. B. Allen A. P. Enquist B. J. et al (2004). The predominance of quarter-power scaling in biology. Funct. Ecol.18, 257–282. 10.1111/j.0269-8463.2004.00856.x
- CrossRef
- Google Scholar
- View reference in article
-
Shah U. K. Mallia J. de O. Singh N. Chapman K. E. Doak S. H. Jenkins G. J. S. (2018). A three-dimensional in vitro HepG2 cells liver spheroid model for genotoxicity studies. Mutat. Res. – Genet. Toxicol. Environ. Mutagen.825, 51–58. 10.1016/j.mrgentox.2017.12.005
- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Sun D. Gao W. Hu H. Zhou S. (2022). Why 90% of clinical drug development fails and how to improve it? Acta Pharm. Sin. B12, 3049–3062. 10.1016/J.APSB.2022.02.002
- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Tirella,A.; Magliaro,C.; Penta,M.; Troncone,M.; Pimentel,R.; Ahluwalia,A. (2014). Sphyga: Açık kaynaklı, çok parametreli akıllı ve ayarlanabilir hidrojel mikrokürecik üretimi için bir araç. Biofabrication6, 025009. 10.1088/1758-5082/6/2/025009
- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Van Hemelryk,A.; Mout,L.; Erkens-Schulze,S.; French,P. J.; van Weerden,W. M.; van Royen,M. E. (2021). Organoid döneminde prostat kanseri tedavi yanıtlarının modellenmesi: 3D ortam ilaç testlerini etkiler. Biomolecules11, 1572. 10.3390/BIOM11111572/S1
- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Vlachogiannis,G.; Hedayat,S.; Vatsiou,A.; Jamin,Y.; Fernández-Mateos,J.; Khan,K.; ve diğerleri (2018). Hastadan elde edilen organoidler, metastatik gastrointestinal kanserlerin tedavi yanıtlarını modeller. Science359, 920–926. 10.1126/SCIENCE.AAO2774
- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Vogt,N. (2021). Assembloidlar. Nature Methods18, 27. 10.1038/S41592-020-01026-X
- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Volterra,V. (1978). Birlikte Yaşayan Türlerin Sayısındaki Değişimler ve Dalgalanmalar, 65–236. 10.1007/978-3-642-50151-7_9
- CrossRef
- Google Scholar
- View reference in article
-
West,G. B.; Brown,J. H.; Enquist,B. J. (1997). Biyolojide tümometrik ölçeklenme yasalarının kökenini açıklayan genel bir model. Science276, 122–126. 10.1126/SCIENCE.276.5309.122
- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
-
Wong C. H., Siah K. W., Lo A. W. (2019). Estimation of clinical trial success rates and related parameters. Biostatistics 20, 273–286. 10.1093/BIOSTATISTICS/KXX069
- Pubmed Abstract
- CrossRef
- Google Scholar
- View reference in article
Özet
Anahtar Kelimeler
hücre içeren yapılar, eşzamanlı varış, sonlu eleman modellemesi, metabolik etkileşim, oksijen tüketimi, oksijen algılama
Başvuru
Mancini P, Magliaro C ve Botte E (2026) Sonlu eleman benzetimleri, oksijen metabolizmasında ölçeği küçültülmüş hücrelerarası etkileşimin in vitro modellerinin tasarımını yönlendiriyor. Front. Bioeng. Biotechnol. 14:1975503. doi: 10.3389/fbioe.2026.1975503
Kabul Tarihi
22 Ağustos 2026
Düzeltilme Tarihi
21 Ekim 2026
Kabul Tarihi
27 Ekim 2026
Yayınlanma Tarihi
10 Kasım 2026
14 – 2026
Stefaan Verbruggen, Queen Mary University of London, Birleşik Krallık
Mario Rothbauer, Medical University of Vienna, Avusturya
Tomasz Garbowski, Poznan University of Life Sciences, Polonya
© 2026 Mancini, Magliaro ve Botte.
Bu makale, Creative Commons Atıf Lisansı (CC BY) koşulları altında erişime açık olarak dağıtılmıştır. Orijinal yazar(lar)ın ve telif hakkı sahibinin atıf yapılması ve bu dergideki orijinal yayının, kabul görmüş akademik uygulama doğrultusunda atıf edilmesi şartıyla, diğer forumlarda kullanım, dağıtım veya çoğaltma izinlidir. Bu koşullara uymayan hiçbir kullanım, dağıtım veya çoğaltma izinlidir.
*İletişim: E. Botte, ermes.botte@ing.unipi.it
Bu makalede ifade edilen tüm iddialar yalnızca yazarlara aittir ve bağlı oldukları kuruluşların, ya da yayıncının, editörlerin ve değerlendirenlerin görüşlerini kesin olarak yansıtmaz. Bu makalede değerlendirilebilecek herhangi bir ürün veya üreticisinin yapabileceği herhangi bir iddia, yayıncı tarafından garanti edilmez veya desteklenmez.
Bu gelişme hakkında düşüncelerinizi, donanım deneyimlerinizi veya sorularınızı Topluluk Forumumuzda paylaşın.
Foruma Katıl & Yanıtla ➔




İlk yorumu siz yazın
Fikrinizi bir kaynak, soru veya yapıcı karşı görüşle geliştirin.